Capítulo 55. Funciones motoras de la médula espinal: los reflejos medulares.

Las respuestas motoras comienzan en la médula espinal con los reflejos musculares relativamente sencillos a causa de información sensitiva, que se extienden hacia el tronco del encéfalo. La sustancia gris medular es la zona de integración para los reflejos medulares, donde las señales entra por medio de las raíces dorsales, viaja hacia dos destinos diferentes: una rama del nervio sensitivo termina casi de inmediato en la sustancia gris de la médula (suscita reflejos medulares segmentarios de ámbito local) y otra rama transmite sus impulsos hacia niveles más altos del sistema nervioso (las zonas superiores de la propia médula, el tronco del encéfalo o incluso la corteza cerebral).
Ver las imágenes de origen

Las motoneuronas anteriores están en cada segmento de las astas anteriores de la sustancia gris medular, pueden ser motoneuronas α y motoneuronas γ. De estas nacen fibras nerviosas, que salen de la médula y viajan por raíces anteriores e inervan directamente las fibras de los músculos esqueléticos.

Ver las imágenes de origen

Para comunicar esta información, los músculos y sus tendones reciben una inervación abundante por parte de dos tipos especiales de receptores sensitivos: los husos musculares y los órganos tendinosos de Golgi. En sus porciones finales sí se contraen y reciben su excitación de fibras nerviosas motoras y también se denominan fibras eferentes γ, en contraposición a las fibras eferentes α grandes (fibras nerviosas α de tipo A) que inervan el músculo esquelético extrafusal. La porción receptora del huso muscular se localiza en su parte central, donde las fibras musculares intrafusales carecen de los elementos contráctiles miosina y actina. El receptor del huso muscular puede excitarse por dos mecanismos:

1. El alargamiento del músculo en su conjunto estira la porción intermedia del huso y, por tanto, estimula al receptor.

2. Aunque la longitud de todo el músculo no cambie, la contracción de las porciones finales de las fibras intrafusales también estira la porción intermedia del huso y así activa el receptor.

La terminación aferente primaria o terminación anuloespiral es una gran fibra nerviosa sensitiva rodea la porción central de cada fibra intrafusal, es de tipo Ia, con un diámetro medio de 17 μm. La terminación aferente secundaria, está situada a un lado de la terminación primaria. También existen dos tipos de fibras intrafusales en el huso muscular: las fibras musculares de bolsa nuclear (de una a tres en cada huso) y las fibras de cadena nuclear (de tres a nueve). La respuesta estática del receptor del huso ocurre cuando las terminaciones primarias y secundarias siguen enviando sus impulsos durante varios minutos como mínimo si el propio huso muscular permanece estirado.

Ver las imágenes de origen


El reflejo miotático o de estiramiento muscular es la manifestación más sencilla del funcionamiento del huso.

El 31% de todas las fibras nerviosas motoras dirigidas al músculo son fibras eferentes γ de tipo A, existe un efecto denominado coactivación de las motoneuronas α y γ, donde se transmiten señales desde la corteza motora o desde cualquier otra área del encéfalo hacia las motoneuronas α y las motoneuronas γ. La coactivación impide que el reflejo miotático muscular se oponga a la contracción del músculo. El sistema eferente γ se activa de forma específica con las señales procedentes de la región facilitadora bulborreticular del tronco del encéfalo y, de un modo secundario, con los impulsos transmitidos hacia la zona bulborreticular desde: 1) el cerebelo 2) los ganglios basales, y 3) la corteza cerebral.

Las vías para desencadenar el reflejo flexor llegan al conjunto de interneuronas de la médula espinal y solo de un modo secundario las motoneuronas. El reflejo flexor está dotado de una organización conveniente para retirar de la fuente de estímulo una porción dolorosa del cuerpo o afectada por algún otro tipo de irritación.

El reflejo extensor cruzado ocurre cuando más o menos entre 0,2 y 0,5 s después de que cualquier estímulo suscite un reflejo flexor en una extremidad, la extremidad contraria comienza a extenderse. Las señales procedentes de los nervios sensitivos cruzan hacia el lado opuesto de la médula para activar los músculos extensores, una vez que ha desaparecido el estímulo doloroso, el reflejo extensor cruzado presenta un período después de la descarga aún más largo que en el caso del reflejo flexor.

Capítulo 55. Funciones motoras de la médula espinal: los reflejos medulares.

Las respuestas motoras comienzan en la médula espinal con los reflejos musculares relativamente sencillos a causa de información sensitiva, que se extienden hacia el tronco del encéfalo. La sustancia gris medular es la zona de integración para los reflejos medulares, donde las señales entra por medio de las raíces dorsales, viaja hacia dos destinos diferentes: una rama del nervio sensitivo termina casi de inmediato en la sustancia gris de la médula (suscita reflejos medulares segmentarios de ámbito local) y otra rama transmite sus impulsos hacia niveles más altos del sistema nervioso (las zonas superiores de la propia médula, el tronco del encéfalo o incluso la corteza cerebral).

Ver las imágenes de origen

Las motoneuronas anteriores están en cada segmento de las astas anteriores de la sustancia gris medular, pueden ser motoneuronas α y motoneuronas γ. De estas nacen fibras nerviosas, que salen de la médula y viajan por raíces anteriores e inervan directamente las fibras de los músculos esqueléticos.

Ver las imágenes de origen

Para comunicar esta información, los músculos y sus tendones reciben una inervación abundante por parte de dos tipos especiales de receptores sensitivos: los husos musculares y los órganos tendinosos de Golgi. En sus porciones finales sí se contraen y reciben su excitación de fibras nerviosas motoras y también se denominan fibras eferentes γ, en contraposición a las fibras eferentes α grandes (fibras nerviosas α de tipo A) que inervan el músculo esquelético extrafusal. La porción receptora del huso muscular se localiza en su parte central, donde las fibras musculares intrafusales carecen de los elementos contráctiles miosina y actina. El receptor del huso muscular puede excitarse por dos mecanismos:

1. El alargamiento del músculo en su conjunto estira la porción intermedia del huso y, por tanto, estimula al receptor.

2. Aunque la longitud de todo el músculo no cambie, la contracción de las porciones finales de las fibras intrafusales también estira la porción intermedia del huso y así activa el receptor.

La terminación aferente primaria o terminación anuloespiral es una gran fibra nerviosa sensitiva rodea la porción central de cada fibra intrafusal, es de tipo Ia, con un diámetro medio de 17 μm. La terminación aferente secundaria, está situada a un lado de la terminación primaria. También existen dos tipos de fibras intrafusales en el huso muscular: las fibras musculares de bolsa nuclear (de una a tres en cada huso) y las fibras de cadena nuclear (de tres a nueve). La respuesta estática del receptor del huso ocurre cuando las terminaciones primarias y secundarias siguen enviando sus impulsos durante varios minutos como mínimo si el propio huso muscular permanece estirado.

Ver las imágenes de origen


El reflejo miotático o de estiramiento muscular es la manifestación más sencilla del funcionamiento del huso.

El 31% de todas las fibras nerviosas motoras dirigidas al músculo son fibras eferentes γ de tipo A, existe un efecto denominado coactivación de las motoneuronas α y γ, donde se transmiten señales desde la corteza motora o desde cualquier otra área del encéfalo hacia las motoneuronas α y las motoneuronas γ. La coactivación impide que el reflejo miotático muscular se oponga a la contracción del músculo. El sistema eferente γ se activa de forma específica con las señales procedentes de la región facilitadora bulborreticular del tronco del encéfalo y, de un modo secundario, con los impulsos transmitidos hacia la zona bulborreticular desde: 1) el cerebelo 2) los ganglios basales, y 3) la corteza cerebral.

Las vías para desencadenar el reflejo flexor llegan al conjunto de interneuronas de la médula espinal y solo de un modo secundario las motoneuronas. El reflejo flexor está dotado de una organización conveniente para retirar de la fuente de estímulo una porción dolorosa del cuerpo o afectada por algún otro tipo de irritación.

El reflejo extensor cruzado ocurre cuando más o menos entre 0,2 y 0,5 s después de que cualquier estímulo suscite un reflejo flexor en una extremidad, la extremidad contraria comienza a extenderse. Las señales procedentes de los nervios sensitivos cruzan hacia el lado opuesto de la médula para activar los músculos extensores, una vez que ha desaparecido el estímulo doloroso, el reflejo extensor cruzado presenta un período después de la descarga aún más largo que en el caso del reflejo flexor.

Capítulo 54. Los sentidos químicos: gusto y olfato.

Los sentidos del gusto y el olfato nos permiten distinguir los alimentos, desencadenan respuestas fisiológicas que intervienen en la digestión y en la utilización de los alimentos, ambos sentidos se encuentran íntimamente ligados a funciones emocionales y conductuales primitivas de nuestro sistema nervioso.

El sentido del gusto

Resultado de imagen de sentido del gusto.gif

Constituye sobre todo una función de las yemas gustativas de la boca, tienen un diámetro aproximado de 1/30 mm y una longitud en torno a 1/16 mm y están compuesta por unas 50 células epiteliales modificadas, algunas de las cuales son células de soporte llamadas células de sostén y otras son células gustativas. Se encuentran en los tres tipos siguientes de papilas linguales: 1) una gran cantidad está en las paredes de las depresiones que rodean a las papilas caliciformes, que forman una línea en «V» sobre la superficie de la parte posterior de la lengua 2) un número moderado queda sobre las papilas fungiformes en la cara anterior plana de la lengua, y 3) una proporción también moderada se encuentra sobre las papilas foliáceas situadas en los pliegues a lo largo de las superficies laterales de la lengua.

Los estudios psicofisiológicos y neurofisiológicos han identificado un mínimo de 13 receptores químicos probables en las células gustativas, de los siguientes tipos: 2 receptores para el sodio, 2 para el potasio, 1 para el cloruro, 1 para la adenosina, 1 para la inosina, 2 para el sabor dulce, 2 para el sabor amargo, 1 para el glutamato y 1 para el ion hidrógeno.

Ver las imágenes de origen

Sensaciones gustativas primarias:

Sabor agrio. Causado por los ácidos. El umbral de estimulación es alrededor de 0,0009 M.

Sabor salado. Causado por las sales ionizadas (ion sodio). Umbral de estimulación es de 0,01 M.

Sabor dulce. Causado por los azúcares, glicoles, alcoholes, aldehídos, cuerpos cetónicos, amidas, ésteres, ciertos aminoácidos, algunas proteínas pequeñas, los ácidos sulfónicos, los ácidos halogenados y las sales inorgánicas de plomo y berilio. Tiene un umbral de estimulación de 0,01 M.

Sabor amargo. Causado por las sustancias orgánicas de cadena larga que contienen nitrógeno, y los alcaloides. Tiene un umbral de estimulación de 0,000008 M.

Sabor umami. Causado por alimentos que contienen l-glutamato.

Ver las imágenes de origen

Todas las fibras gustativas hacen sinapsis en los núcleos del tracto solitario situados en la región posterior del tronco del encéfalo, estos núcleos envían neuronas de segundo orden hacia una pequeña zona del núcleo ventral posteromedial del tálamo. Desde el tálamo, las neuronas de tercer orden se dirigen hacia el polo inferior de la circunvolución poscentral en la corteza cerebral parietal, en la región donde se produce su giro hacia la profundidad de la cisura de Silvio, y hacia el área insular opercular adyacente.

Sentido del olfato

Resultado de imagen de sentido del olfato.gif

La membrana olfatoria ocupa la parte superior de cada narina. Las células olfatorias son células nerviosas bipolares, su extremo mucoso forma un botón desde el que nacen de 4 a 25 cilios olfatorios (también llamados pelos olfatorios), que tienen un diámetro de 0,3 μm y una longitud hasta de 200 μm. Entre las células olfatorias de la membrana olfatoria hay muchas glándulas de Bowman pequeñas que segregan moco hacia la superficie de esta última.


Los cilios olfatorios responden a los estímulos químicos. La sustancia olorosa, al entrar en contacto con la superficie de la membrana olfatoria, primero difunde hacia el moco que cubre los cilios, se une a las proteínas receptoras presentes en la membrana de cada cilio. . El compuesto oloroso se une a la porción de la proteína receptora que se vuelve hacia el exterior. Al excitarse la proteína receptora se desprende una subunidad α de la proteína G y activa la adenilato ciclasa, que está fija al interior de la membrana ciliar cerca del cuerpo de la célula receptora. La ciclasa activada convierte muchas moléculas de trifosfato de adenosina intracelular en monofosfato de adenosina cíclico (AMPc) y este activa otra proteína cercana de la membrana, un canal activado para el ion sodio, que abre su compuerta y permite el vertido de una gran cantidad de iones sodio a través de la membrana hacia el citoplasma de la célula receptora.

Ver las imágenes de origen

Los receptores olfatorios se adaptan alrededor del 50% más o menos durante el primer segundo después de su estimulación. Existe una gran cantidad de fibras nerviosas centrífugas que vuelven por el tracto olfatorio desde las regiones olfatorias del encéfalo y acaban en unas células inhibidoras especiales del bulbo olfatorio, los granos.

El sentido del olfato posee una cualidad afectiva agradable o desagradable y tiene una minúscula cantidad del agente estimulante presente en el aire que es capaz de suscitar una sensación olfatoria.

Las fibras nerviosas olfatorias que bajan desde el bulbo se llaman par craneal I, o tracto olfatorio. Sin embargo, en realidad tanto el tracto como el bulbo constituyen una prolongación anterior del tejido cerebral que emerge desde la base del encéfalo; la dilatación bulbosa de su extremo, el bulbo olfatorio, se halla sobre la lámina cribosa, que separa la cavidad craneal de los tramos superiores de las fosas nasales. La lámina cribosa presenta múltiples perforaciones reducidas a través de las cuales asciende un número idéntico de pequeños nervios desde la membrana olfatoria en la cavidad nasal para entrar en el bulbo olfatorio dentro de la cavidad craneal. Cada bulbo posee varios miles de estos glomérulos, y cada uno de ellos es el punto de terminación de unos 25.000 axones procedentes de las células olfatorias. Todo glomérulo también es la estación terminal para las dendritas de unas 25 grandes células mitrales y unas 60 células en penacho más pequeñas, cuyos cuerpos celulares se hallan en el bulbo olfatorio por encima de los glomérulos.

El tracto olfatorio penetra en el encéfalo a nivel de la unión anterior entre el mesencéfalo y el cerebro; allí, se divide en dos vías: una que sigue en sentido medial hacia el área olfatoria medial del cerebro (consta de un grupo de núcleos situado en las porciones basales intermedias del encéfalo inmediatamente delante del hipotálamo) y la otra en sentido lateral hacia el área olfatoria lateral (está compuesta sobre todo por las cortezas prepiriforme y piriforme además de la porción cortical de los núcleos amigdalinos).

Capítulo 53. El sentido de la audición.

En la membrana timpánica se fija el manubrio o mango del martillo, que está unido al yunque. El extremo opuesto del yunque se articula con la cabeza del estribo y la base de este último descansa sobre el laberinto membranoso de la cóclea en la abertura de la ventana oval. El extremo final del manubrio del martillo se fija al centro de la membrana timpánica y sobre este punto de inserción tira constantemente el músculo tensor del tímpano.

En las condiciones adecuadas, un diapasón o un vibrador electrónico colocado sobre cualquier protuberancia ósea del cráneo, cerca al oído, hace que la persona escuche el sonido. Pero, la energía que arrastra un sonido fuerte no basta para causar la audición a través de la conducción ósea, se necesita a un aparato electromecánico especial para la amplificación del sonido en el hueso.

La cóclea es un sistema de tres tubos en espiral:

Resultado de imagen de coclea.gif

La rampa vestibular y el conducto coclear están separados por la membrana de Reissner y la rampa timpánica y el conducto coclear están divididos por la membrana o lámina basilar, que contiene de 20.000 a 30.000 fibras basilares que se proyectan desde el centro óseo de la cóclea, el modíolo o columela, hacia su pared externa. La longitud de las fibras basilares aumenta progresivamente a partir de la ventana oval y su diámetro disminuye desde la ventana oval hacia la helicotrema. La resonancia de las frecuencias altas en la lámina basilar se produce cerca de su base, zona por donde penetran las ondas sonoras en la cóclea a través de la ventana oval.  La resonancia de las frecuencias bajas sucede cerca del helicotrema.

Ver las imágenes de origen

Al desplazarse la base del estribo hacia dentro contra la ventana oval, la ventana redonda debe abombarse hacia fuera porque la cóclea se encuentra encerrada por todas partes por paredes óseas.

La tensión elástica acumulada en las fibras basilares a medida que se curvan hacia la ventana redonda provoca que una onda de líquido que viaje recorriendo la lámina basilar hacia la helicotrema. La onda de avance consiste en que se desplaza con rapidez a lo largo de la porción inicial de la lámina basilar, pero va frenando poco a poco a medida que avanza por la cóclea.

Cilios diminutos (estereocilios), llevan un sentido ascendente desde las células ciliadas y entran en contacto o quedan sumergidos en el revestimiento gelatinoso superficial de la membrana tectoria, que se halla por encima de los estereocilios en el conducto coclear. La inclinación de los cilios en un sentido despolariza las células ciliadas, y su inclinación en el sentido opuesto las hiperpolariza. El extremo externo de las células ciliadas está anclado a los pilares de Corti (una estructura rígida compuesta por una lámina plana).

Resultado de imagen de coclea.gif

Los sonidos de baja frecuencia dan lugar a una activación máxima de la lámina basilar cerca de la cúpula de la cóclea, y los de alta frecuencia lo hacen cerca de su base. El sistema nervioso utiliza un método fundamental para detectar las diversas frecuencias sonoras y consiste en determinar el punto más estimulado a lo largo de la lámina basilar, que se denomina principio de la posición para la determinación de la frecuencia sonora. Los sonidos de frecuencia grave, desde 20 hasta 1.500 a 2.000 ciclos/s, pueden provocar salvas de impulsos nerviosos sincronizados a la misma frecuencia, y estas salvas transmitirse por el nervio coclear hacia los núcleos cocleares del encéfalo. Un aumento de 10 veces en la energía del sonido se denomina 1 belio, y 0,1 belios reciben el nombre de 1 decibelio. Un decibelio representa un incremento real de 1,26 veces en la energía sonora. Un sonido de 3.000 ciclos/s puede oírse incluso cuando su intensidad sea tan solo de 70 decibelios por debajo de un nivel de presión sonora de 1 dina/cm2, lo que supone una diezmillonésima de microvatio por centímetro cuadrado.

Las fibras nerviosas procedentes del ganglio espiral de Corti penetran en los núcleos cocleares dorsal y ventral situados en la parte superior del bulbo raquídeo. La vía auditiva asciende a través del lemnisco lateral. Parte de las fibras acaban en el núcleo del lemnisco lateral, pero muchas otras se lo saltan y viajan hasta el colículo inferior, donde todas, o casi todas, las fibras auditivas realizan sinapsis. A partir de allí, la vía sigue hacia el núcleo geniculado medial, donde todas las fibras hacen sinapsis. Finalmente, la vía continúa por medio de la radiación auditiva hasta la corteza auditiva, que ocupa básicamente la circunvolución superior del lóbulo temporal. El sistema reticular de activación en el tronco del encéfalo, envía unas proyecciones difusas ascendentes por el tronco del encéfalo y descendentes hacia la médula espinal, y activa todo el sistema nervioso como respuesta a los sonidos fuertes.

La corteza auditiva se halla sobre todo en el plano supratemporal de la circunvolución temporal superior, se extiende hacia la cara lateral del lóbulo temporal, gran parte de la corteza de la ínsula e incluso la porción lateral del opérculo parietal.

Resultado de imagen de corteza auditiva.gif

La corteza auditiva primaria se excita directamente por las proyecciones procedentes del cuerpo geniculado media y las áreas auditivas de asociación se excitan por los impulsos de la propia corteza auditiva primaria además de algunas proyecciones originadas en las áreas talámicas de asociación adyacentes al cuerpo geniculado medial.

Para detectar la dirección de la que procede el sonido comienza en los núcleos olivares superiores del tronco del encéfalo. El núcleo olivar superior se divide en dos componentes:

1) el núcleo olivar superior medial

2) el núcleo olivar superior lateral

El núcleo lateral se ocupa de detectar la dirección de la que viene el sonido, posiblemente mediante la simple comparación entre la diferencia de las intensidades sonoras que llegan a ambos oídos y el envío de la señal correspondiente hacia la corteza auditiva para calcular la dirección.

Cuando surge un patrón espacial de estimulación neuronal en el núcleo olivar superior medial, en el que el sonido viene directamente desde un punto delante de la cabeza, provoca un estímulo máximo en una colección de neuronas olivares, y cuando llega formando diferentes ángulos laterales activa otros grupos de neuronas en lados opuestos.

Capítulo 52. El ojo III: Neurofisiología central de la visión.

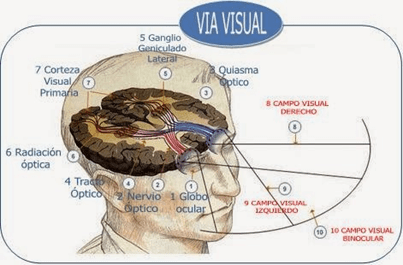
Por medio de los nervios ópticos las señales nerviosas abandonan la retina. Los tractos ópticos o cintillas ópticas se forman cuando en el quiasma óptico, las fibras procedentes de la mitad nasal de la retina cruzan hacia el lado opuesto, donde se unen a las fibras originadas en la retina temporal contraria. Después, se produce una sinapsis de las fibras de cada tracto óptico en el núcleo geniculado del tálamo, a partir del cual las fibras geniculocalcarinas se dirigen a través de la radiación óptica constituyendo el tracto geniculocalcarino, que se dirige hacia la corteza visual primaria en el área correspondiente a la cisura calcarina del lóbulo occipital medial.

El núcleo geniculado lateral dorsal o cuerpo geniculado lateral está situado en el extremo dorsal del tálamo. El cual está compuesto por seis capas nucleares, las capas II, III y V (de ventral a dorsal) reciben señales desde la mitad lateral de la retina del mismo lado, mientras que las capas I, IV y VI las reciben de la mitad medial de la retina del ojo contralateral. Las capas I y II se llaman capas magnocelulares porque contienen neuronas grandes proporcionando una vía de conducción rápida hacia la corteza visual. En cambio, las capas III a VI se denominan capas parvocelulares porque poseen una gran cantidad de neuronas de tamaño pequeño a mediano. Esta estructura tiene las siguientes funciones:

  1. Transfiere la información visual desde el tracto óptico hacia la corteza visual a través de la radiación óptica o tracto geniculocalcarino
  2. Filtra la transmisión de los impulsos hacia la corteza visual

La corteza visual primaria o área visual I, se halla en el área de la cisura calcarina, extendiéndose desde el polo occipital hacia delante por la cara medial de cada corteza occipital. Es la estación terminal de las señales visuales directas procedentes de los ojos. La corteza visual primaria posee seis capas diferentes, la capa IV está entrelazada con las bandas de las columnas neuronales, cuya anchura mide unos 0,5 mm.  La corteza visual posee una organización estructural formada por varios millones de columnas verticales de células neuronales, con un diámetro de 30 a 50 μm cada una.

La mácula es una zona a la que envía sus señales la fóvea de la retina. Las áreas visuales secundarias o áreas visuales de asociación, ocupan zonas laterales, anteriores, superiores e inferiores a la corteza visual primaria.

Después de abandonar la corteza visual primaria, la información referida a la visión se analiza por dos vías principales de las áreas visuales secundarias:

1ra vía. Análisis de la posición tridimensional, la forma global y el movimiento de los objetos: examina la posición tridimensional que ocupan los objetos visuales en el espacio que rodea al organismo y explora la forma física global de la escena visual. Los impulsos viajan en general hacia el área temporal media posterior y ascienden hacia la extensa corteza occipitoparietal

2da vía. Análisis de los detalles visuales y del color: se encarga de la identificación de las letras, la lectura, la determinación de la textura de los objetos, de sus colores detallados, y de descifrar lo que es y lo que significa un objeto a partir de toda esta información.

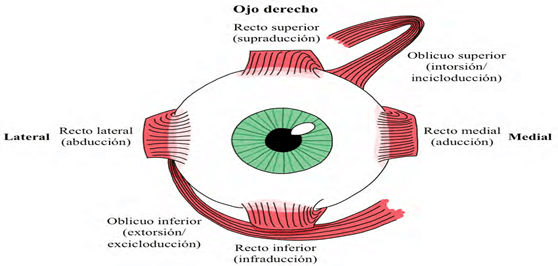
Los movimientos oculares están controlados por tres pares de músculos:  Los rectos medial y lateral, los rectos superior e inferior y los oblicuos superior e inferior.

Los mecanismos neuronales son encargados de la fijación de los ojos, permitiendo el mecanismo voluntario de fijación (controlado por controlados por un campo cortical) y el mecanismo involuntario de fijación.

Para que las percepciones visuales resulten más elocuentes, generalmente se fusionan entre sí las imágenes visuales de ambos ojos según los puntos correspondientes de las dos retinas.

Ver las imágenes de origen

El mecanismo neuronal para la estereopsia o percepción de profundidad se basa en el hecho de que algunas de las vías integradas por las fibras que van desde la retina hacia la corteza visual se apartan cada lado del trayecto central, ciertas vías ópticas procedentes de ambos ojos coinciden exactamente para los objetos a 2 m de distancia, mientras que otro grupo diferente lo hace para los que están situados a 25 m.

El ojo está inervado por fibras nerviosas simpáticas y parasimpáticas. Las fibras preganglionares parasimpáticas nacen en el núcleo de Edinger-Westphal y a continuación viajan en el tercer par hasta el ganglio ciliar, que se halla justo detrás del ojo. Los axones preganglionares hacen sinapsis con las neuronas parasimpáticas posganglionares, las cuales envían sus fibras hacia el globo ocular a través de los nervios ciliares, y estos excitan el músculo ciliar (controla el enfoque del cristalino) y el esfínter del iris (contrae la pupila).

Para tener un buen nivel de agudeza visual es fundamental el mecanismo de acomodación del sistema ocular de lentes. La acomodación deriva de la contracción o relajación del músculo ciliar del ojo. La acomodación del cristalino está regulada por un mecanismo de retroalimentación negativo que corrige automáticamente su poder dióptrico para lograr el mayor grado de agudeza visual.

Miosis es disminución de la apertura pupilar, provocada por la excitación del músculo esfínter de la pupila que es estimulado por nervios parasimpáticos. Midriasis es lo contrario, ocurre con la estimulación de los nervios simpáticos que excita las fibras radiales del iris.

Resultado de imagen de miosis del ojo.gif

El reflejo pupilar fotomotor es cuando las pupilas se contraen a causa de la luz, la cual incide sobre la retina, parte de las señales activadas se dirigen desde los nervios ópticos hasta los núcleos pretectales. La función del reflejo fotomotor consiste en ayudar al ojo a la adaptación rápida a unas condiciones lumínicas cambiantes.

Capitulo 51. Función receptora y nerviosa de la retina.

Retina es la porción del ojo sensible a la luz que contiene:

1) los conos: responsables de la visión de los colores.

2) los bastones: que pueden detectar luz tenue y están encargados básicamente de la visión en blanco y negro y de la visión en la oscuridad.

capas desde el exterior hacia el interior:

1) capa pigmentaria

2) capa de conos y bastones

3) capa nuclear externa

4) capa plexiforme externa

 5) capa nuclear interna

6) capa plexiforme interna

7) capa ganglionar

8) capa de las fibras del nervio óptico

9) membrana limitante interna

Resultado de imagen de retina.gif

Fóvea es una zona diminuta en el centro de la retina, capacitada para la visión aguda y detallada. Fóvea central mide 0,3 mm de diámetro, está compuesta por conos casi en su totalidad.

Ver las imágenes de origen

La sustancia fotosensible se sitúa en el segmento externo. En el caso de los bastones, esta sustancia fotosensible es la rodopsina y en los conos, pigmentos del color. Tanto la rodopsina como los pigmentos de color son proteínas conjugadas. El pigmento negro melanina de la capa pigmentaria impide la reflexión lumínica por toda la esfera del globo ocular, lo que resulta importantísimo para una visión nítida.

La primera etapa en la regeneración de la rodopsina, consiste en reconvertir el todo-trans-retinal en 11-cis- retinal, requiere energía metabólica y está catalizado por la enzima isomerasa de retinal.

Cuando el bastón se encuentra expuesto a la luz, el potencial de receptor resultante es diferente del que existe en casi todos los demás receptores sensitivos, dado que la excitación de un bastón provoca un aumento de la negatividad en el potencial de membrana en su interior, lo que supone un estado de hiperpolarización. Cuando se descompone la rodopsina, disminuye la conductancia de la membrana del bastón para los iones sodio en su segmento externo, canales de sodio activados por GMPc se cierran y la conductancia al sodio de la membrana del segmento externo hacia el interior del bastón se reduce a través de un proceso en tres etapas:

  1. Luz es absorbida por la rodopsina (fotoactivación de los electrones en la parte retiniana).
  2. Rodopsina activada estimula una proteína G (transducina).
  3. Reducción en GMPc cierra los canales de sodio activados por GMPc

El segmento interno bombea sodio sin interrupción desde el interior del bastón hacia su exterior y se bombean iones potasio hacia el interior de la célula, creando un potencial negativo dentro de la célula. En el segmento externo donde están los discos fotorreceptores, en situación de oscuridad es permeable para iones sodio que fluyen a través de canales activados por monofosfato de guanosina cíclico (GMPc), en condiciones de oscuridad normales, cuando el bastón no está excitado, hay una baja electronegatividad en la parte interna a su membrana, que mide unos –40 mV en vez de los habituales –70 a –80 presentes en la mayoría de los receptores sensitivos.

Caracteristicas del potencial de receptor:

  1. Duración: potencial de receptor se produce cuando en los bastones llega un pulso repentino de luz y alcanza la retina, llega a su máximo en cuestión de unos 0,3 s y dura más de 1 s. En los conos, sucede cuatro veces más rápido.
  2. Resulta aproximadamente proporcional al logaritmo de la intensidad de la luz.

Los fotones de luz producen una excitación potente gracias los fotorreceptores que poseen una cascada química sumamente sensible, amplificando los efectos estimuladores. Primero, el fotón activa un electrón en la porción 11-cis-retinal de la rodopsina, generando metarrodopsina II, que a su vez estimula muchas moléculas de transducina; en su forma activa, estimula moléculas de fosfodiesterasa, que hidroliza de inmediato muchas moléculas de GMPc, cerrando los canales de sodio. En un momento determinado, cinasa de rodopsina, desactiva la metarrodopsina II.

La adaptación a la luz, ocurre cuando una persona es expuesta a luz radiante durante horas, las sustancias fotosensibles en los conos y los bastones habrá quedado reducida a retinal (convertido en vitamina A) y opsinas.

La adaptación a la oscuridad, ocurre cuando una persona permanece en la oscuridad durante un período prolongado, el retinal y las opsinas de los conos y los bastones se convierten en los pigmentos sensibles a la luz.

La curva de adaptación a la oscuridad, la primera porción es la adaptación de los conos, los bastones tienen una adaptación lenta y siguen adaptándose durante muchos minutos e incluso horas. 

El ojo humano es capaz de detectar casi todas las gradaciones de color cuando solo las luces roja, verde y azul monocromáticas se mezclan adecuadamente en diversas combinaciones. Las proporciones de estimulación de los tres tipos de conos en este caso son 99:42:0 con una luz monocromática naranja. El sistema nervioso interpreta este juego de proporciones 0:0:97 como azul, 83:83:0 como amarillo y 31:67:36 como verde.

La sensación visual del blanco, es una combinación de todas las longitudes del espectro, también puede lograrse mediante la estimulación de la retina con la combinación oportuna de tres colores escogidos.

En la función nerviosa de la retina, los fotorreceptores, los conos y los bastones, que transmiten las señales hacia la capa plexiforme externa. Después, las células horizontales, tienen salida siempre inhibidora, transmiten las señales en sentido horizontal por la capa plexiforme externa desde los conos y los bastones hasta las células bipolares, las cuales, transmiten las señales en sentido vertical hacia la capa plexiforme interna. Por último, las células amacrinas, transmiten las señales en dos direcciones: directamente desde las células bipolares hasta las células ganglionares, u horizontalmente en el seno de la capa plexiforme interna desde los axones de las células bipolares hasta las dendritas de las células ganglionares o hasta otras células amacrinas. Las células ganglionares, transmiten las señales de salida desde la retina hacia el cerebro a través del nervio óptico.

La vía visual que nace en la porción de la fóvea de la retina representa el nuevo sistema rápido formado por los conos. En la vía directa, encontramos tres neuronas: 1) conos 2) células bipolares 3) células ganglionares.

La conducción electrotónica, es el flujo directo de una corriente eléctrica y no de unos potenciales de acción, a lo largo del citoplasma neuronal y los axones nerviosos desde el punto de excitación hasta las sinapsis de salida,  permite una conducción escalonada de la potencia de la señal.

En el potencial de acción aislado, la magnitud del impulso de salida hiperpolarizante está directamente relacionada con la intensidad de la iluminación y no queda reducida a todo o nada.

Dos son los tipos de células bipolares que suministran señales excitadoras e inhibidoras opuestas en la vía visual: 1) la célula bipolar despolarizante, y 2) la célula bipolar hiperpolarizante.

Se han identificado unas 30 clases de células amacrinas por medios morfológicos e histoquímicos, entre ellas destaca, un tipo de célula amacrina forma parte de la vía directa para la visión de los bastones, otro tipo de células amacrina, presentan una respuesta enérgica al desaparecer las señales visuales, otro tipo de estas células son sensibles a la dirección.

Las células ganglionares son el punto de origen de las fibras largas que llegan al cerebro formando el nervio óptico, parece ser el medio principal para transmitir su patrón hacia el cerebro. Este tipo de células pueden ser estimuladas por varios conos o únicamente por unos pocos, este elemento no cumple ninguna función en la detección de los diversos colores.

Capitulo 50. Óptica de la visión.

El ojo posee un sistema de lentes (compuesto por cuatro superficies de refracción: la separación entre el aire y la cara anterior de la córnea, la separación entre la cara posterior de la córnea y el humor acuoso, la separación entre el humor acuoso y la cara anterior del cristalino y la separación entre la cara posterior del cristalino y el humor vítreo), una pupila que es un sistema de apertura variable y una retina. El sistema ocular de lentes puede enfocar una imagen sobre la retina.

Resultado de imagen de sistema de lentes del ojo.gif

En una persona joven, el cristalino está compuesto por una potente cápsula elástica rellena de un líquido viscoso de carácter proteináceo, pero transparente. Sin tensión aplicada al critalino, 70 ligamentos suspensorios se fijan radialmente en torno al este, con inserciones en los bordes anteriores de la coroides y de la retina.

A nivel de las inserciones laterales de los ligamentos del cristalino en el globo ocular, está situado el músculo ciliar que tiene fibras meridionales (se extienden desde el extremo periférico de los ligamentos suspensorios hasta la unión esclerocorneal y cuando son contraídas arrastran las inserciones periféricas en sentido medial hacia los bordes de la córnea, lo que relaja la tensión que ejercen sobre el propio cristalino) y fibras circulares (producen una acción de tipo esfínter).

Resultado de imagen de cristalino del ojo.gif

Las señales nerviosas parasimpáticas transmitidas hacia el ojo desde el núcleo del tercer par en el tronco del encéfalo contraen los dos tipos de fibras que componen el músculo ciliar, relajando los ligamentos del cristalino y propicia un aumento del grosor y del poder dióptrico de dicha estructura.

Presbicia es cuando el cristalino queda casi totalmente desprovisto de su capacidad de acomodación, ocurriendo mayormente en adultos mayores por la perdida de la desnaturalización de proteínas.

El iris incrementar la cantidad de luz que llega a los ojos en una situación de oscuridad y la disminuye durante el día.

Resultado de imagen de iris del ojo.gif

La luz atraviesa la apertura pupilar y se concentra en la retina. El sistema de lentes con un diámetro de su apertura pupilar pequeña tiene mucha mayor profundidad de foco que un sistema de lentes con diámetro grande. El ojo se considera emétrope, si los rayos de luz paralelos procedentes de objetos alejados quedan enfocados con nitidez en la retina cuando el músculo ciliar esté relajado por completo. Es hipermetropía cuando los rayos de luz se enfocan detrás de la retina debido a globo ocular demasiado corto o un sistema de lentes demasiado débil y es miopía cuando los rayos se enfocan delante de la retina que puede deberse a la acción de un poder dióptrico excesivo en el sistema ocular de lentes.

Ver las imágenes de origen

El astigmatismo es un error de la refracción ocular, la curvatura de una lente astigmática a lo largo de un plano es menor que a lo largo de otro provocando que los rayos luminosos que chocan con sus porciones periféricas en uno de ellos ni con mucho se desvían tanto como los que inciden sobre las porciones periféricas del otro.

El punto retiniano posee un diámetro total de unos 11 μm, el diámetro medio de los conos en la fóvea de la retina, que es su porción central, donde la visión está más desarrollada, es de unos 1,5 μm, lo que supone la séptima parte del diámetro del punto luminoso. La agudeza visual normal del ojo humano que permite distinguir entre las fuentes puntuales de luz es de unos 25 s de arco.

La percepción de la profundidad es la capacidad para determinar la distancia, que es percibida por tres medios principales: el tamaño que poseen las imágenes de los objetos conocidos sobre la retina, el efecto del movimiento de paralaje y el fenómeno de la estereopsia.

Ver las imágenes de origen

Si se sabe que una persona observada mide 1,8 m de altura, puede determinarse la distancia a la que se encuentra simplemente por el tamaño de su imagen en la retina.

Mediante el mecanismo del movimiento de paralaje, puede afirmarse la distancia relativa de los diferentes objetos, aunque no se esté utilizando más que un ojo.

El ojo está relleno de líquido intraocular, que mantiene una presión suficiente en el globo ocular para que siga estando dilatado.

El humor acuoso es un líquido que circula con libertad y se forma en el ojo a una velocidad media de 2 a 3 ml/min, mientras que el humor vítreo o cuerpo vítreo, es una masa gelatinosa cuya cohesión se mantiene por una fina red fibrilar compuesta básicamente por moléculas de proteoglucanos muy largas.

Capitulo 49. Sensibilidades somáticas: II. Dolor, cefalea y sensibilidad térmica

El dolor rápido se siente en cuestión de 0,1 s después de haber aplicado el estímulo correspondiente, mientras que el dolor lento no empieza hasta pasado un mínimo de 1 s y a continuación crece con lentitud a lo largo de muchos segundos y en ocasiones hasta minutos. El dolor rápido también se describe con otros muchos nombres alternativos, como dolor intenso, dolor punzante, dolor agudo y dolor eléctrico.

El dolor lento también se designa con muchos nombres, entre ellos dolor lento urente, dolor sordo, dolor pulsátil, dolor nauseoso y dolor crónico. Este tipo de dolor suele ir asociado a una destrucción tisular. Los receptores para el dolor de la piel y de otros tejidos siempre son terminaciones nerviosas libres. Se encuentran extendidos por las capas superficiales de la piel así como en ciertos tejidos internos, como el periostio, las paredes arteriales, las superficies articulares, y las hoces y la tienda en la bóveda craneal.

Resultado de imagen de acueducto de silvio.gif

Algunos de los productos que excitan el dolor de tipo químico son bradicinina, serotonina, histamina, iones potasio, ácidos, acetilcolina y enzimas proteolíticas. Una sustancia que parece más dolorosa que las demás es la bradicinina. El espasmo muscular también es una causa frecuente de dolor y representa el fundamento de muchos síndromes clínicos dolorosos.

Al penetrar en la médula espinal, las señales de dolor toman dos caminos hacia el encéfalo, a través: 1) del fascículo neoespinotalámico, que termina:

2) del fascículo paleoespinotalámico:

Unas pocas fibras del fascículo neoespinotalámico acaban en la formación reticular del tronco del encéfalo, pero la mayoría pasan de largo hacia el tálamo sin realizar paradas, y terminan en el complejo ventrobasal junto al fascículo de la columna dorsal-lemnisco medial encargado de la sensibilidad táctil. Se piensa que el glutamato es la sustancia neurotransmisora segregada en la médula espinal por las terminaciones de las fibras nerviosas para el dolor de tipo Aδ.

La vía paleoespinotalámica es un sistema mucho más antiguo y básicamente transmite el dolor procedente de las fibras periféricas de tipo C dotado de un carácter lento crónico, aunque también transporta algunas señales correspondientes a las fibras de tipo Aδ.

En esta vía, dichas fibras periféricas acaban en la médula espinal casi en su integridad entre las láminas II y III de las astas dorsales, que en conjunto reciben el nombre de sustancia gelatinosa. La sustancia P se libera con mucha mayor lentitud, acumulándose su concentración durante un período de segundos o incluso de minutos. De hecho, se ha propuesto que la sensación dolorosa (doble) que se percibe después de un pinchazo podría derivar en parte de la circunstancia de que el glutamato proporciona el componente que le corresponde con mayor rapidez, mientras que el de la sustancia P llega más rezagado. Únicamente de una décima a una cuarta parte de las fibras continúan su trayecto hacia el tálamo. En vez de esto, la mayoría acaban en una de las tres áreas siguientes: 1) los núcleos de la formación reticular del bulbo raquídeo, la protuberancia y el mesencéfalo; 2) la región tectal del mesencéfalo profunda a los colículos superiores e inferiores, o 3) la zona gris periacueductal que rodea al acueducto de Silvio.

Sistema de analgesia es mecanismo para controlar el dolor consta de tres componentes fundamentales: (1) la región gris periacueductal y las áreas periventriculares del mesencéfalo y la parte superior de la protuberancia que rodean al acueducto de Silvio y a las porciones del tercer y del cuarto ventrículos. Desde estas zonas, las neuronas envían señales hacia (2) el núcleo magno del rafe, un núcleo delgado de la línea media situado en las partes inferior de la protuberancia y superior del bulbo raquídeo, y el núcleo reticular paragigantocelular, que ocupa una posición lateral en este último. A partir de estas estructuras, se transmiten señales descendentes de segundo orden por las columnas dorsolaterales de la médula espinal hacia (3) un complejo inhibidor del dolor localizado en las astas dorsales de la médula espinal.

Dolor visceral procede de las diferentes vísceras del abdomen y del tórax es uno de los escasos criterios que pueden utilizarse para diagnosticar una inflamación visceral, las enfermedades infecciosas y otros padecimientos a este nivel. Una de las discrepancias más importantes entre el dolor derivado de la superficie y el dolor visceral consiste en que los daños de tipo muy localizado en las vísceras rara vez originan un dolor intenso. El dolor procedente de las vísceras suele estar localizado en dos regiones superficiales del cuerpo al mismo tiempo debido a su transmisión doble a través de la vía visceral referida y la vía parietal directa.

Las gradaciones térmicas se distinguen como mínimo por tres tipos de receptores sensitivos: receptores para el frío, receptores para el calor y receptores para el dolor. Los receptores para el dolor se estimulan únicamente ante un grado extremo de calor o de frío y, por tanto, son responsables, junto a los receptores para el frío y para el calor, de las sensaciones de (frío helado) y (calor ardiente).

La detección de la temperatura probablemente no deriva de los efectos físicos directos que ejercen el calor o el frío sobre las terminaciones nerviosas, sino de su estimulación química al verse modificadas por la temperatura. Al entrar en la médula espinal, las vias de la temperatura ascienden o descienden unos cuantos segmentos por el fascículo de Lissauer y después terminan sobre todo en las láminas I, II y III de las astas dorsales: las mismas que en el caso del dolor.

Capitulo 49. Sensibilidades somáticas: I. Organización general, las sensaciones táctil y posicional

La sensibilidad somática es el mecanismo nervioso que recopila la información sensitiva de todo el cuerpo. La sensibilidad exterorreceptora es la que procede de la superficie del cuerpo. La sensibilidad propioceptiva es la que tiene que ver con el estado físico del cuerpo, como las sensaciones posicionales, las tendinosas y musculares, las de presión originadas en la planta de los pies e incluso la sensación de equilibrio (que a menudo se considera una sensibilidad «especial» en vez de una sensibilidad somática).

Resultado de imagen de sensibilidad propioceptiva.gif

La sensibilidad visceral es la que deriva de las vísceras del cuerpo; al emplear este término, uno suele referirse en concreto a las sensaciones de los órganos internos.

Resultado de imagen de sensibilidad visceral.gif

La sensibilidad profunda es la que viene de los tejidos profundos, como las fascias, los músculos y los huesos. Casi todos los receptores sensitivos especializados, como los corpúsculos de Meissner, los receptores en cúpula de Iggo, los receptores pilosos, los corpúsculos de Pacini y las terminaciones de Ruffini, envían sus señales por fibras nerviosas de tipo Aβ que poseen una velocidad de transmisión entre 30 y 70 m/s.

Resultado de imagen de sensibilidad visceral.gif

Por el contrario, los receptores táctiles de las terminaciones nerviosas libres mandan sus señales sobre todo a través de pequeñas fibras mielínicas de tipo Aδ que no conducen más que a una velocidad de 5 a 30 m/s. Casi toda la información sensitiva procedente de los segmentos somáticos corporales penetra en la médula espinal a través de las raíces dorsales de los nervios raquídeos. Sin embargo, desde su punto de entrada estas señales son transmitidas por la médula y más tarde por el encéfalo a través de una de las dos vías sensitivas alternativas siguientes: 1) el sistema de la columna dorsal-lemnisco medial, o 2) el sistema anterolateral. Estos dos caminos vuelven a reunirse parcialmente a nivel del tálamo.

El sistema de la columna dorsal-lemnisco medial, como su nombre da a entender, transporta señales en sentido ascendente básicamente por las columnas dorsales de la médula hacia el bulbo raquídeo en el encéfalo. A continuación, después de hacer sinapsis y cruzar al lado opuesto a este nivel, siguen subiendo a través del tronco del encéfalo hasta el tálamo dentro del lemnisco medial.

Resultado de imagen de sistema de la columna dorsal-lemnisco medial.gif

El sistema de la columna dorsal-lemnisco medial está compuesto por fibras nerviosas mielínicas grandes que transmiten señales hacia el cerebro a una velocidad de 30 a 110 m/s, mientras que el sistema anterolateral está integrado por fibras mielínicas más pequeñas cuya velocidad de transmisión oscila desde unos pocos metros por segundo hasta 40 m/s.

Resultado de imagen de fibras mielinicas.gif

Al penetrar en la médula espinal a través de las raíces dorsales de los nervios raquídeos, las grandes fibras mielínicas procedentes de los mecanorreceptores especializados se dividen casi de inmediato para dar lugar a una rama medial y una rama lateral, lo que se observa en la fibra que queda a mano derecha entrando por la raíz medular. la corteza cerebral humana, que manifiesta su división en unas 50 zonas distintas llamadas áreas de Brodmann según su diferente estructura histológica. Este mapa es importante porque lo usan prácticamente todos los neurofisiólogos y neurólogos para referirse a muchas de las diferentes áreas funcionales existentes en la corteza humana por su número. Las señales visuales acaban en el lóbulo occipital, y las señales auditivas terminan en el lóbulo temporal. El área somatosensitiva I se halla inmediatamente detrás de la cisura central, situada en la circunvolución poscentral de la corteza cerebral humana (corresponde a las áreas de Brodmann 3, 1 y 2). 1. La persona es incapaz de localizar las diversas sensaciones de forma diferenciada en las distintas partes del cuerpo. Sin embargo, sí puede hacerlo de un modo rudimentario, como en una mano concreta, en un gran nivel del tronco o en una de las piernas. Por tanto, está claro que el tronco del encéfalo, el tálamo o porciones de la corteza que normalmente no se consideran relacionadas con la sensibilidad somática pueden lograr cierto grado de localización. 2. La persona es incapaz de valorar un grado crítico de presión sobre el cuerpo. 3. La persona es incapaz de valorar el peso de los objetos. 4. La persona es incapaz de valorar las formas o la configuración de los objetos. Este trastorno se llama astereognosia. 5. La persona es incapaz de valorar la textura de los materiales porque este tipo de evaluación depende de sensaciones muy críticas originadas por el movimiento de los dedos sobre la superficie que se pretende explorar. Las áreas 5 y 7 de Brodmann de la corteza cerebral, situadas en la corteza parietal detrás del área somatosensitiva I.

 La vía anterolateral, encargada de la transmisión de señales sensitivas ascendentes por la médula espinal y en dirección al encéfalo, al revés que la vía de la columna dorsal, transporta unos tipos que no requieren una localización muy diferenciada de la fuente de origen ni tampoco una distinción en cuanto a las gradaciones finas de intensidad. En general, los mismos principios que sirven para el sistema de la columna dorsal-lemnisco medial se aplican a la transmisión por la vía anterolateral, exceptuando las siguientes diferencias: 1) la velocidad de transmisión solo llega a un tercio o la mitad de la que posee el sistema de la columna dorsal- lemnisco medial, y oscila entre 8 y 40 m/s; 2) el grado de localización espacial de las señales es escaso; 3) la gradación de las intensidades también es mucho menos precisa, y en la mayoría de las sensaciones se identifican de 10 a 20, en vez de alcanzar las 100 como el sistema de la columna dorsal, y 4) la capacidad para transmitir señales que se repitan o varíen con rapidez es mala. 

47. Receptores sensitivos, circuitos neuronales para el procesamiento de la información

Son cinco tipos básicos de receptores sensitivos: 1) mecanorreceptores 2) termorreceptores 3) nocirreceptores (receptores del dolor)  4) receptores electromagnéticos 5) quimiorreceptores

Resultado de imagen de corpusculos de pacini.gif

La respuesta señala que cada fascículo nervioso termina en un punto específico del sistema nervioso central y el tipo de sensación vivida cuando se estimula una fibra nerviosa queda determinado por la zona del sistema nervioso a la que conduce esta fibra.

Resultado de imagen de corpusculos de meissner.gif

La amplitud máxima de la mayoría de los potenciales de receptor sensitivos es de unos 100 mV, pero este valor no se alcanza más que cuando la intensidad del estímulo correspondiente es altísima. Otra característica que comparten todos los receptores sensitivos es su adaptación parcial o total a cualquier estímulo constante después de haber transcurrido un tiempo.

El mecanismo de adaptación varía con cada tipo de receptor, básicamente lo mismo que la producción de un potencial de receptor constituye una propiedad individual. En parte deriva de reajustes en la estructura del receptor y en parte es resultado de un tipo de acomodación eléctrico en la fibrilla nerviosa terminal.

La convergencia significa que un conjunto de señales procedentes de múltiples orígenes se reúnen para excitar una neurona concreta. Los potenciales de acción que convergen sobre la neurona desde muchos terminales proporcionan una sumación espacial suficiente para llevar a la célula hasta el umbral necesario de descarga. La convergencia también puede surgir con las señales de entrada (excitadoras o inhibidoras) derivadas de múltiples fuentes. Esta convergencia permite la sumación de información derivada de diversas fuentes y la respuesta resultante reúne el efecto acumulado de todos los diferentes tipos de información. La convergencia es uno de los medios importantes que utiliza el sistema nervioso central para relacionar, sumar y clasificar distintas clases de información. Uno de los circuitos más importantes del sistema nervioso es el circuito reverberante u oscilatorio. Está ocasionado por una retroalimentación positiva dentro del circuito neuronal que ejerce una retroalimentación encargada de reexcitar la entrada del mismo circuito.

El estímulo de entrada puede durar solo 1 ms más o menos, y sin embargo la salida prolongarse muchos milisegundos o incluso minutos. La imagen pone de manifiesto que al principio de la reverberación la intensidad de la señal de salida suele crecer hasta un valor alto y a continuación disminuye hasta llegar a un punto crítico, en el que súbitamente cesa del todo. Las neuronas, igual que otros tejidos excitables, descargan de forma repetida si el nivel del potencial de membrana excitador sube por encima de un cierto valor umbral.

Dos tipos de circuitos inhibidores sirven para impedir la difusión excesiva de las señales por extensas regiones del encéfalo: 1) los circuitos de retroalimentación inhibidores que vuelven desde el extremo terminal de una vía hacia las neuronas excitadoras iniciales de esa misma vía (estos circuitos existen prácticamente en todas las vías nerviosas sensitivas e inhiben tanto sus neuronas de entrada como las neuronas intermedias cuando el extremo terminal está demasiado excitado), y 2) ciertos grupos neuronales que ejercen un control inhibidor global sobre regiones generalizadas del cerebro.

Diseña un sitio como este con WordPress.com
Comenzar