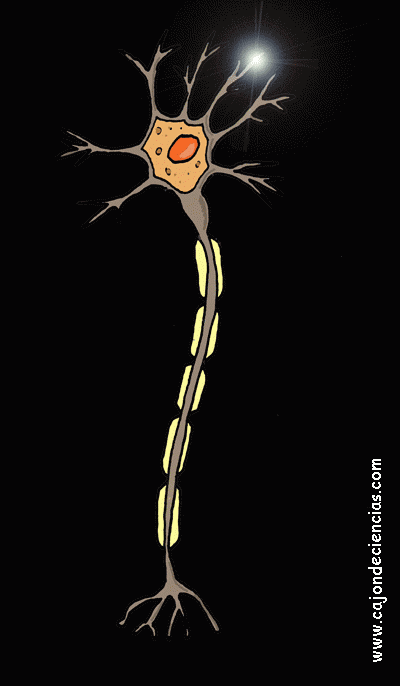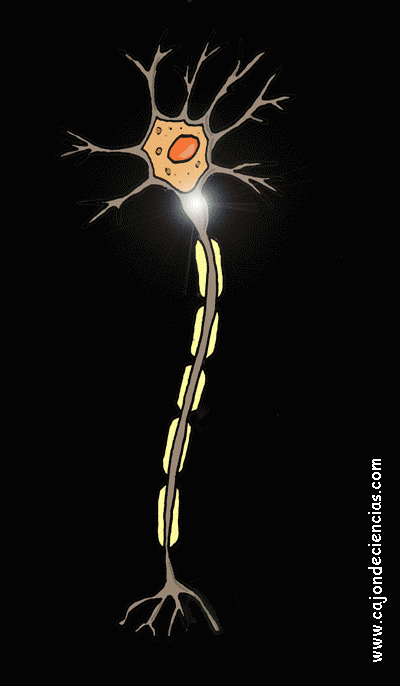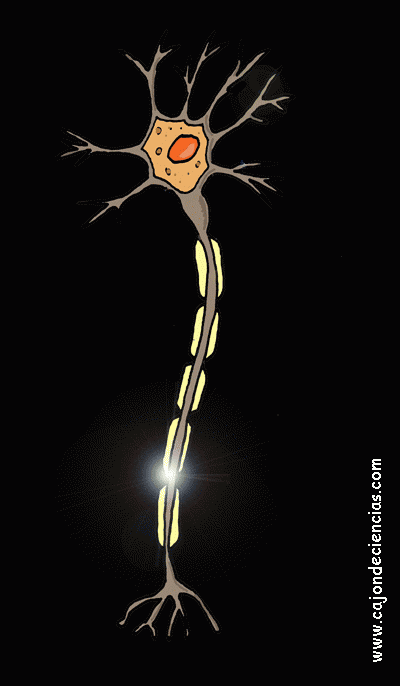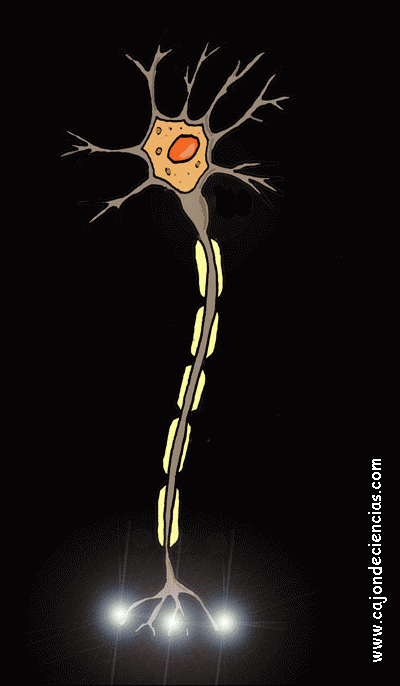
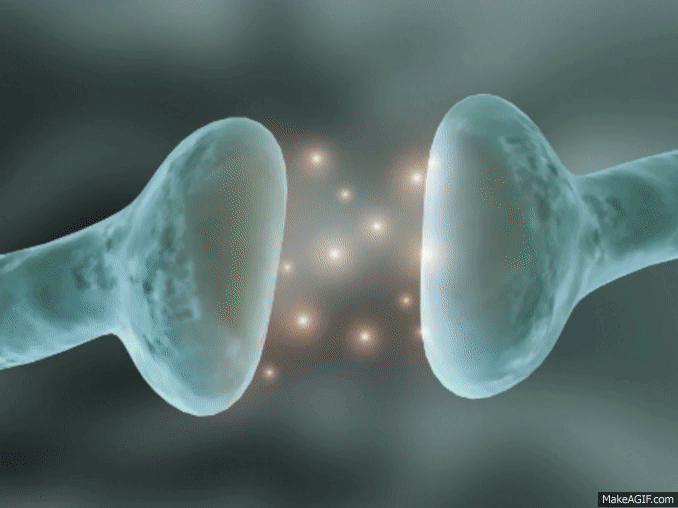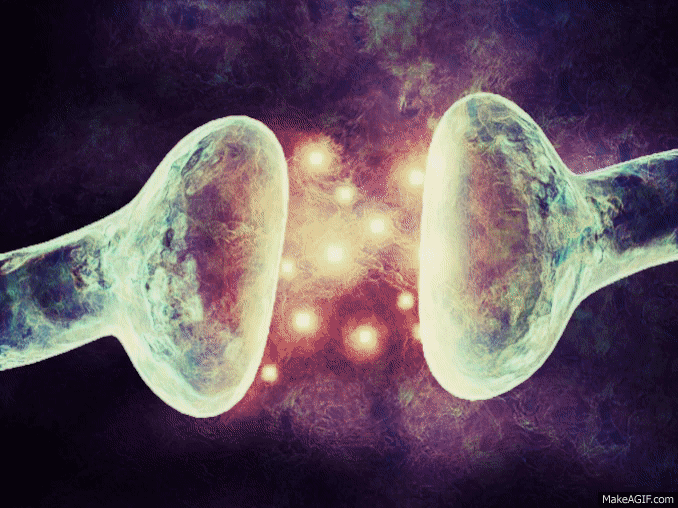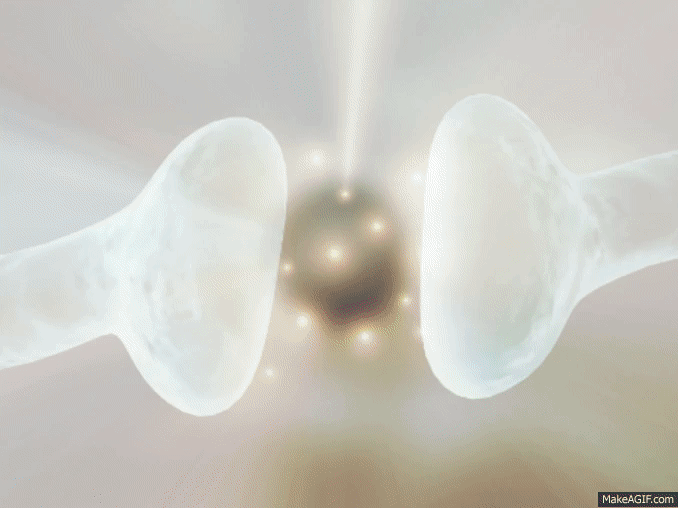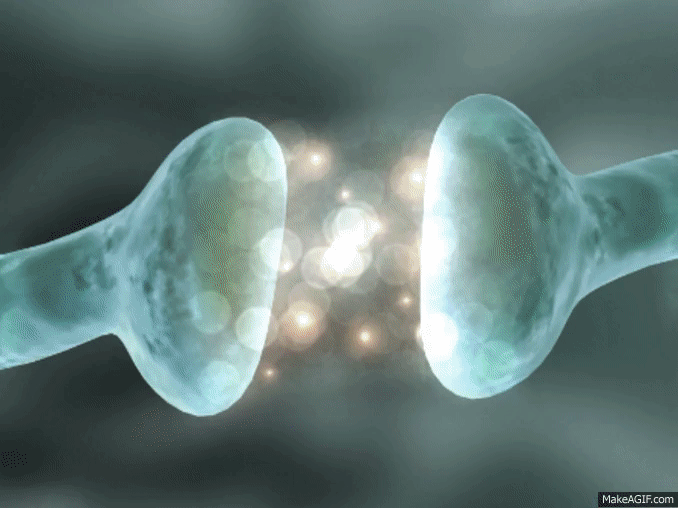
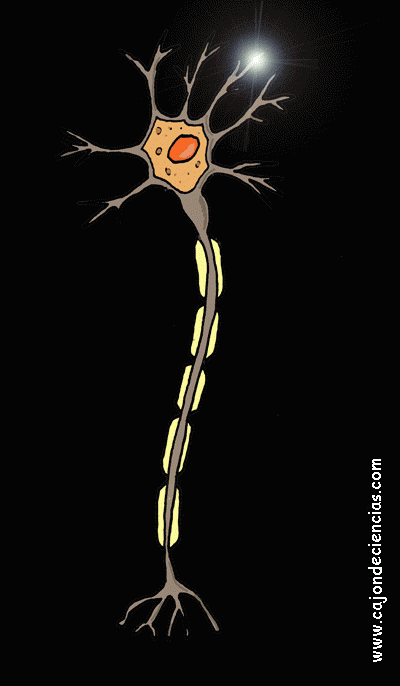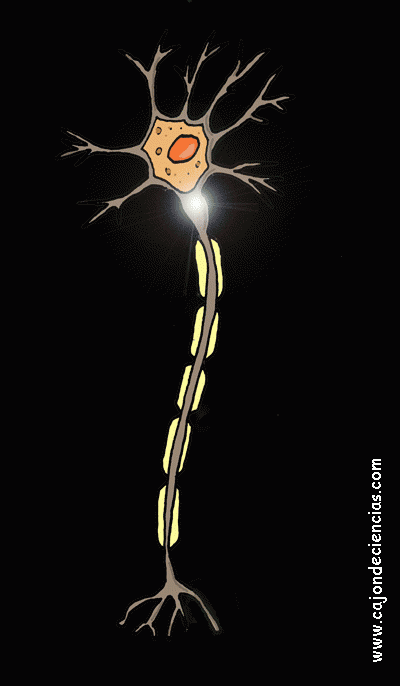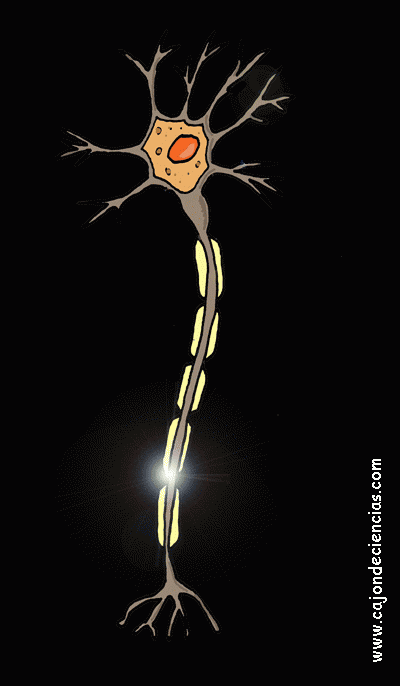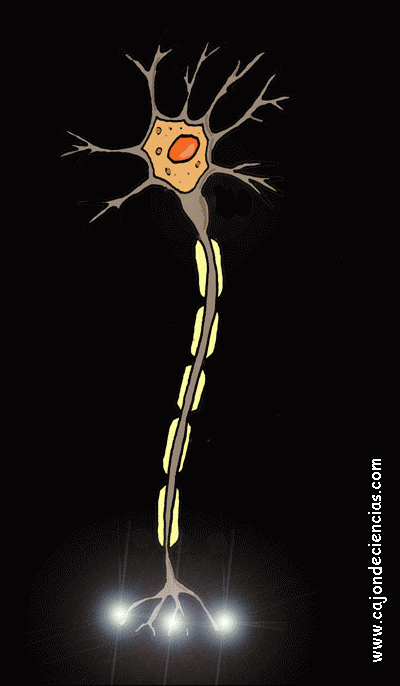
Las señales de entrada llegan a las neuronas través de las sinapsis situadas fundamentalmente en las dendritas neuronales, pero también en el soma celular. Según los diversos tipos de neuronas, las conexiones sinápticas procedentes de las fibras aferentes pueden ser tan solo unos cientos o llegar hasta 200.000.
La porción somática del sistema sensitivo, que transmite información sensitiva desde los receptores repartidos por la superficie de todo el cuerpo y desde algunas estructuras profundas.
Sistema nervioso autónomo, opera de forma paralela a su acción, estando encargado de controlar la musculatura lisa, las glándulas y otros sistemas corporales internos.
Una de las funciones más importantes del sistema nervioso consiste en elaborar la información que le llega de tal modo que dé lugar a las respuestas motoras y mentales adecuadas. El encéfalo descarta más del 99% de toda la información sensitiva que recibe por carecer de interés o de importancia. señales facilitadoras e inhibidoras procedentes de otras regiones del sistema nervioso tienen la capacidad de controlar la transmisión sináptica, a veces abriendo las sinapsis para efectuar la comunicación y en otras ocasiones cerrándolas. Además, algunas neuronas postsinápticas responden con un amplio número de impulsos de salida y otras lo hacen solo con unos pocos. La mayor parte del almacenamiento tiene lugar en la corteza cerebral, pero hasta las regiones basales del encéfalo y la médula espinal pueden conservar pequeñas cantidades de información. La acumulación de la información es el proceso que llamamos memoria, y también constituye una función de las sinapsis.
los procedimientos de deliberación del encéfalo comparan las experiencias sensitivas nuevas con los recuerdos acumulados; a continuación, estos últimos sirven para seleccionar la información sensitiva nueva que resulte más importante y encauzarla hacia las regiones correspondientes para el almacenamiento de la memoria a fin de permitir su uso en el futuro o hacia las regiones motoras para dar lugar a las respuestas corporales inmediatas.
La información recorre el sistema nervioso central sobre todo bajo la forma de potenciales de acción nerviosos, llamados simplemente impulsos nerviosos, a través de una sucesión de neuronas, una después de la otra.
La mayoría de las sinapsis utilizadas para la transmisión de señales en el sistema nervioso central del ser humano son sinapsis químicas. En estas sinapsis, la primera neurona segrega un producto químico denominado neurotransmisor (a menudo llamado sustancia transmisora) a nivel de la terminación nerviosa, que a su vez actúa sobre las proteínas receptoras presentes en la membrana de la neurona siguiente para excitarla, inhibirla o modificar su sensibilidad de algún otro modo. Hasta hoy se han descubierto más de 40 neurotransmisores importantes.
En las sinapsis eléctricas los citoplasmas de las células adyacentes están conectados directamente por grupos de canales de iones llamados uniones en hendidura que permiten el movimiento libre de los iones desde el interior de una célula hasta el interior de la siguiente.
La membrana del terminal presináptico se llama membrana presináptica. Contiene una gran abundancia de canales de calcio dependientes de voltaje.
Los canales iónicos de la membrana neuronal postsináptica suelen ser de dos tipos: 1) canales catiónicos, cuya clase más frecuente deja pasar iones sodio cuando se abren, pero a veces también cumplen esta función con el potasio o el calcio, y 2) canales aniónicos, que permiten sobre todo el paso de los iones cloruro, pero también de minúsculas cantidades de otros aniones.
Existen diversos tipos de sistemas de segundo mensajero. Uno de los más frecuentes recurre a un grupo de proteínas llamadas proteínas G. El complejo de proteínas G inactivas está libre en el citosol y consta de difosfato de guanosina (GDP) más tres elementos: un componente alfa (α), que es la porción activadora de la proteína G, y unos componentes beta (β) y gamma (γ) que están pegados al componente α. Mientras el complejo de proteínas G está unido a GDP, permanece inactivo.
Las vesículas que se almacenan y liberan transmisores de molécula pequeña se reciclan continuamente y se utilizan una y otra vez. Una vez que se fusionan con la membrana sináptica y se abren para verter la sustancia transmisora, la membrana de la vesícula simplemente forma parte al principio de la membrana sináptica.
Los neuropéptidos se sintetizan de otro modo y tienen acciones que normalmente son lentas y en otros aspectos bastante diferentes de las que ejercen los transmisores de molécula pequeña. Las moléculas proteicas penetran a continuación en los espacios existentes en el retículo endoplásmico del soma y posteriormente en el aparato de Golgi, donde suceden dos cambios. se transportan por el axón en todas las direcciones hacia el extremo de las fibras nerviosas a través de la corriente axónica del citoplasma, viajando a una velocidad de tan solo unos pocos centímetros al día. Finalmente, estas vesículas vierten su contenido en los terminales neuronales como respuesta a los potenciales de acción de la misma manera que los transmisores de molécula pequeña. Sin embargo, la vesícula sufre una autólisis y no se reutiliza.
un potencial de membrana en reposo de unos –65 mV. Este potencial de membrana en reposo es un poco menos negativo que los – 90 mV existentes en las grandes fibras nerviosas periféricas y en las del músculo esquelético.
La entrada de cloruro más la salida de potasio elevan el grado de negatividad intracelular, lo que se denomina hiperpolarización. Un aumento de la negatividad por encima del potencial de membrana en reposo normal se denomina potencial postsináptico inhibidor (PPSI). efecto aditivo de los potenciales postsinápticos simultáneos mediante la activación de múltiples terminales situados en regiones muy espaciadas de la membrana neuronal se denomina sumación espacial.
Está formado por fibras mucho menores, habitualmente de 1 a 5 mm de diámetro y de sólo 20 a 500 mm de longitud. Por el contrario, las fibras musculares esqueléticas tienen un diámetro hasta 30 veces mayor y una longitud cientos de veces mayor. Muchos de los mismos principios de la contracción se aplican al músculo liso y al músculo esquelético. Lo que es más importante, esencialmente las mismas fuerzas de atracción entre los filamentos de miosina y actina producen la contracción en el músculo liso y en el músculo esquelético, pero la disposición física interna de
MÚSCULO LISO MULTIUNITARIO
Este tipo de músculo está formado por fibras lisas separadas y discretas, cada una de ellas trabaja de manera independiente y se encuentran inervadas por una sola terminación nerviosa, en la superficie de su membrana se encuentra una capa delgada compuesta por colágeno fino y glucoproteínas que aísla a las fibras.
La característica más importante de las fibras musculares lisas multiunitarias es que cada una de las fibras se puede contraer independientemente de las demás, y su control se ejerce principalmente por señales nerviosas. Está presente en el músculo ciliar del ojo, el músculo del iris del ojo y los músculos piloerectores que producen la erección del pelo.
MÚSCULO LISO UNITARIO
Este tipo se denomina músculo liso sincitial o músculo liso visceral, se denomina unitario no porque sean fibras únicas y separadas, sino que son una masa de cientos a miles de fibras musculares lisas. Están dispuestas en láminas o fascículos y sus membranas se conectan en varios puntos por uniones en hendidura por lo que los iones pueden fluir libremente de una célula muscular a otra y en caso de un potencial de acción las fibras se contraigan simultáneamente. Se denomina músculo liso visceral porque se encuentra en la pared de la mayor parte de las vísceras del cuerpo, por ejemplo, el aparato digestivo, las vías biliares, los uréteres, el útero y muchos vasos sanguíneos.
MECANISMO CONTRÁCTIL
El músculo liso contiene filamentos tanto de actina como de miosina, que tienen características químicas similares a los filamentos de actina y miosina del músculo esquelético. No contiene el complejo de troponina normal que es necesario para el control de la contracción del músculo esquelético, de modo que el mecanismo de control de la contracción es diferente.
El proceso contráctil también es activado por iones calcio y se necesita degradar el ATP en ADP para obtener energía.
En el músculo liso se encuentran unas estructuras denominadas cuerpos densos, unos están unidos a la membrana celular, otros dispersos en el interior de la célula. Su función es similar a la de los discos z en el músculo esquelético.
Hay otra diferencia: la mayor parte de los filamentos de miosina tiene lo que se denomina puentes cruzados “lateropolares”, dispuestos de tal manera que los puentes de un lado basculan en una dirección y los del otro lado basculan en la dirección opuesta. Lo que significa que en la contracción la miosina puede tirar de un lado y de otro. Esta disposición de las fibras provoca la utilización del 80% de la longitud del músculo liso en la contracción, a diferencia del 30% que se usa en el músculo esquelético.
CICLADO LENTO DE PUENTES CRUZADOS DE MIOSINA
Una diferencia muy notable en el músculo liso a comparación del esquelético es la lentitud de los puentes de miosina, la frecuencia es tan baja como 1/10 a 1/300 de la del músculo esquelético.
Pero se cree que esta fracción de tiempo que ocupan los puentes de miosina, provoca la fuerza con la que se contrae el músculo liso. Una posible razón del ciclado lento es que las cabezas de los puentes cruzados tienen una actividad ATPasa mucho menor que en el músculo esquelético, de modo que la degradación del ATP que aporta energía a los movimientos de las cabezas de los puentes cruzados está muy reducida.
BAJA NECESIDAD DE ENERGÍA PARA MANTENER LA CONTRACCIÓN
Para mantener la contracción en el músculo liso durante un largo tiempo solo es necesario 1/10 a 1/300 de energía en comparación con el músculo esquelético, esto se debe a la lentitud de los puentes cruzados de miosina, además que necesitan solo una molécula de ATP para contraerse, independientemente de la duración.
LENTITUD DEL INICIO DE CONTRACCIÓN Y RELAJACIÓN
Un tejido muscular liso típico comienza a contraerse de 50 a 100 ms después de ser excitado, alcanza la contracción completa aproximadamente 0,5 s después, y después la fuerza contráctil disminuye en 1 a 2 segundos más, dando un tiempo total de contracción de 1 a 3 s. Lo que representa que es 30 veces más lento que el esquelético, pero existen varios tipos de músculo liso, pueden durar 0.2s o hasta 30s.
FUERZA DE CONTRACCIÓN
Aunque la presencia de filamentos de miosina es escasa en el músculo liso, la fuerza de contracción es mayor a la del esquelético, de 4-6kg/cm cuadrado mientras que en el esquelético es de 3-4kg/cm cuadrado.
MECANISMO DE CERROJO
Una vez que el músculo liso haya comenzado la contracción, la excitación inicial puede ir disminuyendo con el tiempo, más no así la fuerza de la contracción, además del mínimo gasto de energía en el proceso. La importancia de este mecanismo es que el músculo se pude mantener contraído durante horas. Por eso este músculo se halla en vísceras que necesitan de contracción para su funcionamiento.
TENSIÓN-RELAJACIÓN
Otra característica importante del músculo liso, especialmente del tipo unitario visceral de músculo liso de muchos órganos huecos, es su capacidad de recuperar casi su fuerza de contracción original segundos a minutos después de que haya sido alargado o acortado.
Por ejemplo, cuando el volumen de la vejiga aumenta, la pared de esta se distiende y aumenta la presión de la vejiga, pero después de 15s-1min, la presión comienza a recuperar sus niveles normales. Lo que se denomina como tensión-relajación.
En caso de que la presión baje súbitamente, durante un tiempo se conservara así, pero después recuperara los niveles normales, lo que se conoce como tensión-relajación inversa.
REGULACIÓN DE LA CONTRACCIÓN POR EL CALCIO
El músculo liso también activa su contracción por la presencia del calcio, pero a diferencia del esquelético no hay troponina sino calmodulina, una molécula que actúa de la siguiente manera:
1.- Los iones calcio se unen a la calmodulina
2.- El complejo calmodulina-calcio se une después a la miosina cinasa de cadena ligera, que es una enzima fosforiladora, y la activa.
3.-Una de las cadenas ligeras de la cabeza de la miosina (cabeza reguladora) se fosforila por la enzima. Esto hace que la cabeza se una al filamento de actina para que tiré de él, al igual que ocurre en el músculo esquelético.
Cuando la concentración de iones calcio disminuye por debajo de un nivel crítico, los procesos que se acaban de señalar se invierten automáticamente, excepto la fosforilación de la cabeza de miosina. La inversión de esta reacción precisa otra enzima, la miosina fosfatasa. Esta se encuentra en el citosol de la célula y escinde el fosfato de la cadena reguladora, por lo que el final de la contracción está determinado en gran parte por la miosina fosfatasa.
CONTROL NERVIOSO Y HORMONAL
La contracción del músculo liso puede ser estimulada por múltiples tipos de señales: señales nerviosas, estimulación hormonal, distensión del músculo y otros diversos estímulos. Esto se debe a la variedad de proteínas receptoras que tiene el músculo liso.
UNIÓN NEUROMUSCULAR
El músculo liso esta inervado por fibras nerviosas autónomas, estas fibras no lo hacen de manera directa con el músculo, sino que forman las denominadas uniones difusas, que secretan su sustancia transmisora hacia el recubrimiento de matriz del músculo liso. La mayor parte de los axones terminales delgados tiene múltiples varicosidades distribuidas a lo largo de sus ejes. En estos puntos se interrumpen las células de Schwann que rodean a los axones, de modo que se puede secretar la sustancia transmisora a través de las paredes de las varicosidades.
las vesículas de las terminaciones de las fibras nerviosas autónomas contienen acetilcolina en algunas fibras y noradrenalina en otras, y de manera ocasional también otras sustancias. En algunos casos existe un espacio de 20-30nm entre las varicosidades y la membrana del músculo liso, lo que se llama uniones de contacto.
SUSTANCIAS EXCITADORAS E INHIBIDORAS
Las sustancias transmisoras más importantes que secretan los nervios autónomos que inervan el músculo liso son acetilcolina y noradrenalina, La acetilcolina es una sustancia transmisora excitadora de las fibras musculares lisas en algunos órganos y un transmisor inhibidor en el músculo liso de otros órganos. Funcionan de manera complementaria, cuando la ACh excita la noradrenalina inhibe, y cuando la ACh inhibe la noradrenalina excita. Esta cualidad se debe a que en la membrana se encuentran receptores excitadores e inhibidores.
POTENCIALES DE ACCION
El potencial de membrana en reposo del músculo liso es de -50 a -60mV, los potenciales de acción del músculo liso visceral se producen en una de dos formas: 1) potenciales en espiga y 2) potenciales de acción con meseta.
POTENCIAL EN ESPIGA
La duración de este tipo de potencial es de 10 a 50ms, estos potenciales de acción se pueden generar de muchas maneras, por ejemplo, mediante estimulación eléctrica, por la acción de hormonas sobre el músculo liso, por la acción de sustancias transmisoras procedentes de las fibras nerviosas, por distensión o como consecuencia de su generación espontánea en la propia fibra muscular.
POTENCIAL EN MESETA
El inicio de este potencial de acción es similar al del potencial en espiga típico. Sin embargo, en lugar de la repolarización rápida de la membrana de la fibra muscular, la repolarización se retrasa durante varios cientos hasta 1s.
EXCITACIÓN POR DISTENSIÓN
Cuando el músculo visceral se distiende lo suficiente, normalmente se producen potenciales de acción debido a 2 cosas:
Los potenciales de oda lenta (pequeños estímulos provocados localmente)
Disminución de la negatividad provocada por la misma distención.
Por ejemplo, en el intestino, se generan contracciones por distención, lo que provoca los conocidos movimientos peristálticos.
CONTRACCIÓN DEL MÚSCULO LISO POR FACTORES QUÍMICOS TISULARES
El músculo liso es muy contráctil y responde rápidamente a los cambios de las condiciones químicas locales del líquido intersticial circundante. De esta forma, un potente sistema de control de retroalimentación local controla el flujo sanguíneo a la zona tisular local. Algunos de los factores de control específicos son los siguientes:
1. La ausencia de oxígeno en los tejidos locales produce relajación del músculo liso y, por tanto, vasodilatación.
2. El exceso de anhídrido carbónico produce vasodilatación.
3. El aumento de la concentración de iones hidrógeno produce vasodilatación.
La adenosina, el ácido láctico, el aumento de los iones potasio, la disminución de la concentración de los iones calcio y el aumento de la temperatura corporal producen vasodilatación local.
La organización del músculo esquelético y muestra que todos los músculos esqueléticos están formados por numerosas fibras cuyo diámetro varía entre 10 y 80 μm.
El sarcolema está formado por una membrana celular verdadera, denominada membrana plasmática, y una cubierta externa formada por una capa delgada de material polisacárido que contiene numerosas fibrillas delgadas de colágeno. En cada uno de los dos extremos de la fibra muscular la capa superficial del sarcolema se fusiona con una fibra tendinosa.
La porción de la miofibrilla (o de la fibra muscular entera) que está entre dos discos Z sucesivos se denomina sarcómero. La relación de yuxtaposición entre los filamentos de miosina y de actina se mantiene por medio de un gran número de moléculas filamentosas de una proteína denominada titina. La molécula de titina también parece actuar como molde para la formación inicial de porciones de los filamentos contráctiles del sarcómero, especialmente los filamentos de miosina.
Mecanismo general de la contracción muscular El inicio y la ejecución de la contracción muscular se producen en las siguientes etapas secuenciales:
1. Un potencial de acción viaja a lo largo de una fibra motora hasta sus terminales sobre las fibras musculares.
2. En cada terminal, el nervio secreta una pequeña cantidad de la sustancia neurotransmisora acetilcolina.
3. La acetilcolina actúa en una zona local de la membrana de la fibra muscular para abrir múltiples canales de cationes «activados por acetilcolina» a través de moléculas proteicas que flotan en la membrana.
4. La apertura de los canales activados por acetilcolina permite que grandes cantidades de iones sodio difundan hacia el interior de la membrana de la fibra muscular.
5. El potencial de acción viaja a lo largo de la membrana de la fibra muscular de la misma manera que los potenciales de acción viajan a lo largo de las membranas de las fibras nerviosas.
6. El potencial de acción despolariza la membrana muscular, y buena parte de la electricidad del potencial de acción fluye a través del centro de la fibra muscular.
7. Los iones calcio inician fuerzas de atracción entre los filamentos de actina y miosina, haciendo que se deslicen unos sobre otros en sentido longitudinal, lo que constituye el proceso contráctil.
El esqueleto del filamento de actina es una molécula de la proteína F-actina bicatenaria. Las dos hebras están enroscadas en una hélice de la misma manera que la molécula de miosina.
En presencia de grandes cantidades de iones calcio, se inhibe el propio efecto inhibidor del complejo troponina-tropomiosina sobre los filamentos de actina.
La longitud del sarcómero y de la cantidad de la superposición entre los filamentos de miosina y de actina sobre la tensión activa que desarrolla una fibra muscular en contracción.
A medida que la longitud del sarcómero disminuye desde 2 μm hasta aproximadamente 1,65 μm, en el punto A, se produce una rápida disminución de la fuerza de la contracción. En este punto los dos discos Z del sarcómero se encuentran apoyados en los extremos de los filamentos de miosina.
Muchas características de la contracción muscular se pueden demostrar desencadenando espasmos musculares únicos. Esto se puede conseguir con la excitación eléctrica instantánea del nervio que inerva un músculo o haciendo pasar un estímulo eléctrico breve a través del propio músculo, dando lugar a una única contracción súbita que dura una fracción de segundo.
Las características de las fibras lentas son las siguientes: 1. Las fibras son más pequeñas que las fibras rápidas. 2. Las fibras lentas están también inervadas por fibras nerviosas más pequeñas. 3. En comparación con las fibras rápidas, las fibras lentas tienen un sistema de vascularización más extenso y más capilares para aportar cantidades adicionales de oxígeno. 4. Las fibras lentas tienen números muy elevados de mitocondrias, también para mantener niveles elevados de metabolismo oxidativo. 5. Las fibras lentas contienen grandes cantidades de mioglobina, una proteína que contiene hierro y que es similar a la hemoglobina de los eritrocitos.
Incluso cuando los músculos están en reposo habitualmente hay una cierta cantidad de tensión, que se denomina tono muscular. Como las fibras normales del músculo esquelético no se contraen sin que ningún potencial de acción estimule las fibras, el tono del músculo esquelético se debe totalmente a impulsos nerviosos de baja frecuencia que proceden de la médula espinal.
La concentración de potasio es grande dentro de la membrana de una fibra nerviosa, pero muy baja fuera de esta. A medida que lo hacen transportan cargas eléctricas positivas hacia el exterior, generando de esta manera electropositividad fuera de la membrana y electronegatividad en el interior debido a los aniones negativos que permanecen detrás y que no difunden hacia fuera con el potasio.
En la fibra nerviosa normal del mamífero la diferencia de potencial es de aproximadamente 94 mV, con negatividad en el interior de la membrana de la fibra.
El nivel del potencial de difusión a través de una membrana que se opone exactamente a la difusión neta de un ion particular a través de la membrana se denomina potencial de Nernst para ese ion: la magnitud del potencial de Nernst viene determinada por el cociente de las concentraciones de ese ion específico en los dos lados de la membrana. Cuanto mayor es este cociente, mayor es la tendencia del ion a difundir en una dirección y, por tanto, mayor será el potencial de Nernst necesario para impedir la difusión neta adicional.
La ecuación de Goldman o ecuación de Goldman-Hodgkin-Katz, da el potencial de membrana calculado en el interior de la membrana cuando participan dos iones positivos univalentes, sodio (Na+) y potasio (K+), y un ion negativo univalente, cloruro (Cl–).
POTENCIAL DE MEMBRANA
El potencial de membrana en reposo de las fibras nerviosas grandes cuando no transmiten señales nerviosas es de aproximadamente –90 mV.
Es decir, el potencial en el interior de la fibra es 90 mV más negativo que el potencial del líquido extracelular que está en el exterior de la misma.
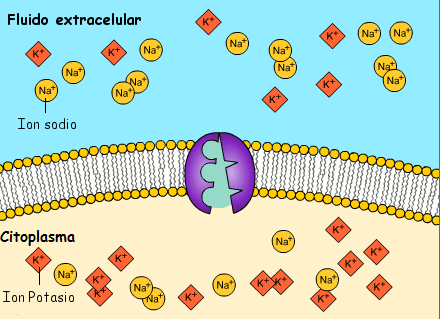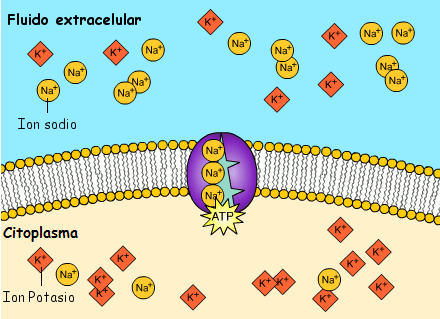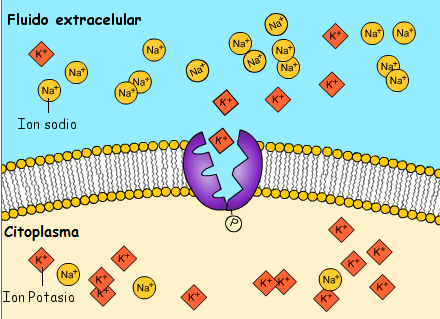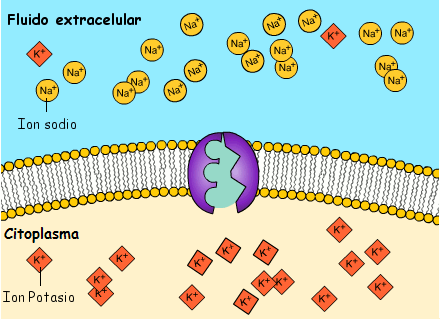
La bomba sodio-potasio es una bomba electrógena porque se bombean más cargas positivas hacia el exterior que hacia el interior (tres iones Na+ hacia el exterior por cada dos iones K+ hacia el interior), dejando un déficit neto de iones positivos en el interior; esto genera un potencial negativo en el interior de la membrana celular. El denominado canal de potasio de dominios de poro en tándem, o canal de «fuga» de potasio (K+), en la membrana nerviosa a través de la que pueden escapar iones potasio incluso en una célula en reposo.
El potencial de Nernst que corresponde a este cociente es de –94 mV porque el logaritmo de 35 es 1,54, y 1,54 multiplicado por –61 mV es –94 mV. Por tanto, si los iones potasio fueran el único factor que genera el potencial en reposo, el potencial en reposo en el interior de la fibra sería igual a –94 mV, como se muestra en la figura.
Potencial de acción de las neuronas
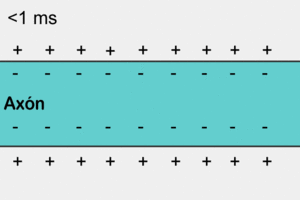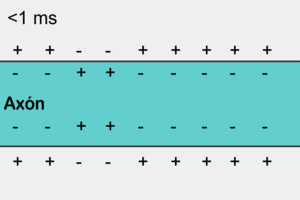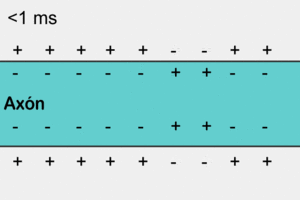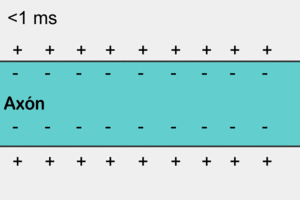
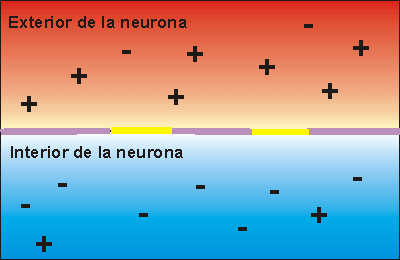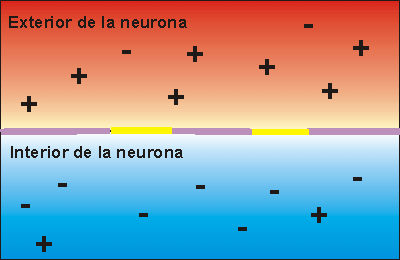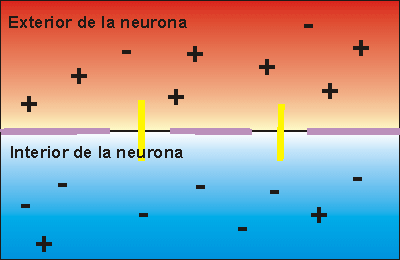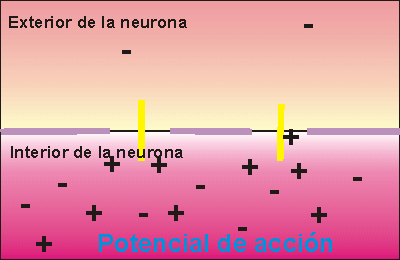
Las señales nerviosas se transmiten mediante potenciales de acción que son cambios rápidos del potencial de membrana que se extienden rápidamente a lo largo de la membrana de la fibra nerviosa. Cada potencial de acción comienza con un cambio súbito desde el potencial de membrana negativo en reposo normal hasta un potencial positivo y termina con un cambio casi igual de rápido de nuevo hacia el potencial negativo. Para conducir una señal nerviosa el potencial de acción se desplaza a lo largo de la fibra nerviosa hasta que llega a su extremo.
Activación e inactivación del canal de sodio activado por el voltaje
El canal de sodio activado por el voltaje en tres estados distintos. Este canal tiene dos compuertas, una cerca del exterior del canal, denominada compuerta de activación, y otra cerca del interior, denominada compuerta de inactivación. La parte superior izquierda de la figura representa el estado de estas dos compuertas en la membrana en reposo normal, cuando el potencial de membrana es de –90 mV. En este estado la compuerta de activación está cerrada, lo que impide la entrada de iones sodio hacia el interior de la fibra a través de estos canales de sodio.
Activación del canal de sodio Cuando el potencial de membrana se hace menos negativo que durante el estado de reposo, aumentando desde –90 mV hacia cero, finalmente alcanza un voltaje (habitualmente algún punto entre –70 y –50 mV) que produce un cambio conformacional súbito en la activación de la compuerta, que bascula totalmente hasta la posición de abierta. Durante este estado activado, los iones sodio pueden atravesar el canal, aumentando la permeabilidad de la membrana al sodio hasta 500 a 5.000 veces.
Durante el estado de reposo, antes de que comience el potencial de acción, la conductancia a los iones potasio es 50 a 100 veces mayor que la conductancia a los iones sodio. Esta disparidad se debe a una fuga mucho mayor de iones potasio que sodio a través de los canales de fuga. Sin embargo, al inicio del potencial de acción se activan instantáneamente los canales de sodio y dan lugar a un aumento de la conductancia al sodio de 5.000 veces. Después el proceso de inactivación cierra los canales de sodio en otra fracción de milisegundo.
Un ciclo de retroalimentación positiva abre los canales de sodio Primero, siempre que no haya alteraciones de la membrana de la fibra nerviosa, no se produce ningún potencial de acción en el nervio normal. Sin embargo, si algún episodio produce una elevación suficiente del potencial de membrana desde –90 mV hacia el nivel cero, el propio aumento del voltaje hace que empiecen a abrirse muchos canales de sodio activados por el voltaje. Esta situación permite la entrada rápida de iones sodio, lo que produce una elevación adicional del potencial de membrana y abre aún más canales de sodio activados por el voltaje y permite que se produzca una mayor entrada de iones sodio hacia el interior de la fibra.
Umbral para el inicio del potencial de acción No se producirá un potencial de acción hasta que el aumento inicial del potencial de membrana sea lo suficientemente grande como para dar origen al ciclo de retroalimentación positiva que se ha descrito en el párrafo anterior. Esto se produce cuando el número de iones sodio que entran en la fibra supera al número de iones potasio que salen. Habitualmente es necesario un aumento súbito del potencial de membrana de 15 a 30 mV.
Ritmicidad de algunos tejidos excitables: descarga repetitiva Las descargas repetitivas autoinducidas aparecen normalmente en el corazón, en la mayor parte del músculo liso y en muchas neuronas del sistema nervioso central. Estas descargas rítmicas producen: 1) el latido rítmico del corazón; 2) el peristaltismo rítmico de los intestinos, y 3) fenómenos neuronales, como el control rítmico de la respiración.
Las fibras grandes son mielinizadas y las pequeñas no mielinizadas. Un tronco nervioso medio contiene aproximadamente el doble de fibras no mielinizadas que mielinizadas.
Las células de Schwann depositan la vaina de mielina alrededor del axón de la siguiente manera: en primer lugar, la membrana de una célula de Schwann rodea el axón. Después, la célula de Schwann rota muchas veces alrededor del axón, depositando múltiples capas de membrana de la célula de Schwann que contiene la sustancia lipídica esfingomielina. Esta sustancia es un excelente aislante eléctrico que disminuye el flujo iónico a través de la membrana aproximadamente 5.000 veces. En la unión entre dos células de Schwann sucesivas a lo largo del axón permanece una pequeña zona no aislada de solo 2 a 3 μm de longitud en la que los iones pueden seguir fluyendo con facilidad a través de la membrana del axón entre el líquido extracelular y el líquido intracelular del interior del axón. Esta zona se denomina nódulo de Ranvier.
No se puede producir un nuevo potencial de acción en una fibra excitable mientras la membrana siga despolarizada por el potencial de acción precedente. El período durante el cual no se puede generar un segundo potencial de acción, incluso con un estímulo intenso, se denomina período refractario absoluto. Para las fibras nerviosas mielinizadas grandes este período es de aproximadamente 1/2.500 s.
La membrana está formada casi totalmente por una bicapa lipídica, aunque también contiene grandes números de moléculas proteicas insertadas en los lípidos, muchas de las cuales penetran en todo el grosor de la membrana.
La bicapa no es miscibles con el liquido extracelular ni con el liquido intracelular.
Por tanto, constituye una barrera frente al movimiento de moléculas de agua y de sustancias insolubles entre los compartimientos del líquido extracelular e intracelular.
Molécula de agua
El transporte a través de la membrana celular, ya sea directamente a través de la bicapa lipídica o a través de las proteínas, se produce mediante uno de dos procesos básicos: difusión o transporte activo.
Difusión se refiere a un movimiento molecular aleatorio de las sustancias molécula a molécula, a través de espacios intermoleculares de la membrana o en combinación con una proteína transportadora es un movimiento continuo de moléculas entre sí en los líquidos o los gases. La energía que hace que se produzca la difusión es la energía del movimiento cinético normal de la materia. Por el contrario, el transporte activo se refiere al movimiento de iones o de otras sustancias a través de la membrana en combinación con una proteína transportadora de tal manera que la proteína transportadora hace que la sustancia se mueva contra un gradiente de energía, como desde un estado de baja concentración a un estado de alta concentración.
La velocidad de difusión de cada una de estas sustancias a través de la membrana es directamente proporcional a su liposolubilidad.
Muchas de las membranas celulares del cuerpo contienen «poros» proteicos denominados acuaporinas que permiten selectivamente el rápido paso de agua a través de la membrana celular.
Los poros están compuestos por proteínas de membranas celulares integrales que forman tubos abiertos a través de la membrana y que están siempre abiertos. Sin embargo, el diámetro de un poro y sus cargas eléctricas proporcionan una selectividad que permite el paso de solo ciertas moléculas a su través.
Los canales de potasio permiten el paso de iones potasio a través de la membrana celular con una facilidad aproximadamente 1.000 veces mayor que para el paso de iones sodio.
En la parte superior del poro del canal se distribuyen bucles de poro que forman un estrecho filtro de selectividad. Como revestimiento del filtro de selectividad hay oxígenos de carbonilo. Cuando los iones potasio hidratados entran en el filtro de selectividad, interaccionan con los oxígenos de carbonilo y envuelven la mayoría de sus moléculas de agua ligadas, lo que permite que los iones potasio deshidratados pasen a través del canal.
La apertura y el cierre de las compuertas están controlados de dos maneras principales:
El método del «pinzamiento zonal de membrana» (patch-clamp) para el registro del flujo de una corriente iónica a través de canales proteicos aislados.
. El resultado es un minúsculo «parche» de membrana en la punta de la pipeta a través del cual se puede registrar el flujo de la corriente eléctrica.
La difusión facilitada también se denomina difusión mediada por un transportador porque una sustancia que se transporta de esta manera difunde a través de la membrana con la ayuda de una proteína transportadora específica para contribuir al transporte. Es decir, el transportador facilita la difusión de la sustancia hasta el otro lado.
La velocidad a la que la sustancia difunde hacia dentro es proporcional a la concentración de las moléculas en el exterior, porque esta concentración determina cuántas moléculas chocan contra el exterior de la membrana cada segundo. Por el contrario, la velocidad a la que las moléculas difunden hacia afuera es proporcional a su concentración en el interior de la membrana. Por tanto, la velocidad de difusión neta hacia el interior de la célula es proporcional a la concentración en el exterior menos la concentración en el interior
Si se aplica un potencial eléctrico a través de la membrana, las cargas eléctricas de los iones hacen que se muevan a través de la membrana aun cuando no haya ninguna diferencia de concentración que produzca el movimiento.
En ocasiones se produce una gran diferencia de presión entre los dos lados de una membrana permeable. La presión realmente significa la suma de todas las fuerzas de las diferentes moléculas que chocan contra una unidad de superficie en un momento dado.
OSMOSIS
Se puede producir una diferencia de concentración del agua a través de la membrana. Cuando se produce esto, tiene lugar un movimiento neto de agua a través de la membrana celular, haciendo que la célula se hinche o que se contraiga, dependiendo de la dirección del movimiento del agua. Este proceso de movimiento neto del agua que se debe a la producción de una diferencia de la concentración del agua se denomina ósmosis.
La cantidad de presión necesaria para detener la ósmosis se denomina presión osmótica de la solución de cloruro sódico. Un osmol es el peso molecular-gramo de un soluto osmóticamente activo. Por tanto, 180 g de glucosa, que es el peso molecular-gramos de la glucosa, son equivalentes a un osmol de glucosa porque la glucosa no se disocia en iones. A la temperatura corporal normal, 37 °C, una concentración de un osmol por litro producirá una presión osmótica de 19.300 mmHg en la solución. Osmolaridad es la concentración osmolar expresada en osmoles por litro de solución en lugar de osmoles por kilogramo de agua.
TRANSPORTE ACTIVO PRIMARIO
El mecanismo de transporte activo que se ha estudiado con mayor detalle es la bomba sodio-potasio (Na+-K+), que es el proceso de transporte que bombea iones sodio hacia fuera a través de la membrana celular de todas las células y al mismo tiempo bombea iones potasio desde el exterior hacia el interior.
Esta bomba es responsable de mantener las diferencias de concentración de sodio y de potasio a través de la membrana celular, así como de establecer un voltaje eléctrico negativo en el interior de las células. El mecanismo para controlar el volumen es el siguiente: en el interior de la célula hay grandes cantidades de proteínas y de otras moléculas orgánicas que no pueden escapar de la célula. La mayoría de estas proteínas y otras moléculas orgánicas tienen carga negativa y, por tanto, atraen grandes cantidades de potasio, sodio y también de otros iones positivos. Todas estas moléculas e iones producen ósmosis de agua hacia el interior de la célula.
En condiciones adecuadas esta energía de difusión del sodio puede arrastrar otras sustancias junto con el sodio a través de la membrana celular. Este fenómeno, denominado cotransporte, es una forma de transporte activo secundario. Para que el sodio arrastre otra sustancia con él es necesario un mecanismo de acoplamiento, lo cual se consigue por medio de otra proteína transportadora de la membrana celular. En este caso el transportador actúa como punto de unión tanto para el ion sodio como para la sustancia que se va a cotransportar. Una vez que los dos están unidos, el gradiente de energía del ion sodio hace que este ion y la otra sustancia sean transportados juntos hacia el interior de la célula. En el contratransporte, los iones sodio intentan una vez más difundir hacia el interior de la célula debido a su gran gradiente de concentración. El mecanismo básico para el transporte de una sustancia a través de una lámina celular es: 1) transporte activo a través de la membrana celular de un polo de las células transportadoras de la capa, y después 2) difusión simple o difusión facilitada a través de la membrana del polo opuesto de la célula.
Cada gen, que está compuesto por ácido desoxirribonucleico (ADN), controla automáticamente la formación de otro ácido nucleico, el ácido ribonucleico (ARN), que después se dispersa por toda la célula para controlar la formación de una proteína específica. El proceso completo, desde la transcripción del código genético en el núcleo hasta la traducción del código del ARN y la formación de proteínas en el citoplasma celular, se refiere a menudo como expresión génica.
Con 30.000 genes diferentes en cada célula, es posible formar un gran número de proteínas celulares distintas.
En el núcleo celular hay un gran número de genes unidos por sus extremos, formando las moléculas de doble hélice largas de ADN que tienen un peso molecular que se mide por miles de millones.
Compuestos químicos básicos implicados en la formación del ADN: 1) el ácido fosfórico; 2) el azúcar desoxirribosa, y 3) cuatro bases nitrogenadas (dos purínicas, adenina y guanina, y dos pirimidínicas, timina y citosina).
La primera etapa en la formación del ADN consiste en combinar una molécula de ácido fosfórico, una molécula de desoxirribosa y una de las cuatro bases para formar un nucleótido ácido.
El esqueleto de cada hebra de ADN está compuesto por moléculas de ácido fosfórico y desoxirribosa que se van alternando. A su vez, las bases de purina y pirimidina se unen a los lados de las moléculas de desoxirribosa, después, las dos hebras respectivas de ADN se mantienen unidas mediante enlaces débiles de hidrógeno, entre las bases purínicas y pirimidínicas. Sin embargo, es preciso observar que: 1. Cada base purínica de adenina de una hebra siempre se une con una base pirimidínica de timina de la otra. 2. Cada base purínica de guanina siempre se une con una base pirimidínica de citosina. La secuencia de los pares de bases complementarios es CG, CG, GC, TA, CG, TA, GC, AT y AT. Debido a la laxitud de los enlaces de hidrógeno, las dos hebras se separan con facilidad y lo hacen muchas veces cuando realizan sus funciones en la célula. Para situar al ADN. En cada vuelta completa de la hélice de la molécula de ADN hay 10 pares de nucleótidos.
La importancia del ADN se debe a su capacidad para controlar la formación de las proteínas en la célula, que se consigue mediante un código genético.Este control se consigue mediante la intermediación de otro tipo de ácido nucleico, el ARN, cuya formación está controlada por el ADN del núcleo. El código se transfiere al ARN en un proceso que se conoce como transcripción. A su vez, el ARN se difunde desde el núcleo a través de los poros del núcleo al compartimiento citoplásmico, donde controla la síntesis proteica.
El siguiente paso de la síntesis de ARN es la «activación» de los nucleótidos de ARN por una enzima, polimerasa de ARN. Esta activación se produce añadiendo a cada nucleótido dos radicales fosfato más para formar trifosfatos (dos nucleótidos de ARN en el extremo derecho durante la formación de la cadena de ARN). Estos dos últimos fosfatos se combinan con el nucleótido mediante enlaces de fosfato de alta energía derivados del ATP celular.
En la cadena de ADN inmediatamente contigua al gen que se transcribirá hay una secuencia de nucleótidos denominada promotor. La polimerasa de ARN tiene una estructura complementaria apropiada que reconoce este promotor y se une a él en un paso esencial para iniciar la formación de la molécula de ARN.
2. La polimerasa de ARN, después de unirse al promotor, provoca el desenrollamiento de dos vueltas de la hélice de ADN, aproximadamente, y la separación de las porciones abiertas de las dos hebras.
3. Después, la polimerasa se desplaza a lo largo de la hebra de ADN, desenrollando y separando temporalmente las dos hebras de ADN en cada etapa de su movimiento. A medida que se desplaza va añadiéndose en cada paso un nucleótido de ARN activado nuevo en el extremo de la cadena de ARN que se va formando.
Cuando una molécula de ARNm entra en contacto con un ribosoma, se desplaza por este a partir de un extremo predeterminado de la molécula de ARN que se especifica mediante la secuencia apropiada de las bases de ARN, el codón «iniciador de la cadena». Mientras el ARNm se desplaza por el ribosoma, se forma una molécula proteica, en un proceso que se conoce como traducción. Es decir, el ribosoma lee los codones del ARNm igual que una cinta se «lee» cuando va pasando por el cabezal de un magnetófono. Después, se marca el final de una molécula proteica cuando un codón de parada (el codón «terminador de la cadena») atraviesa el ribosoma y la molécula proteica se libera en el citoplasma.
Una molécula sencilla de ARNm puede formar moléculas proteicas en varios ribosomas al mismo tiempo, porque el extremo inicial de la cadena de ARN puede ir atravesando ribosomas sucesivos cuando abandona el primero. Como consecuencia de este proceso es frecuente encontrar agrupaciones de ribosomas, uniéndose entre 3 y 10 ribosomas a una única molécula de ARNm al mismo tiempo, conformando un polirribosoma.
Pasos químicos de la síntesis proteica
El ciclo vital de una célula es el período que transcurre desde el inicio de la reproducción celular hasta el inicio de la siguiente reproducción celular. Cuando las células de los mamíferos no están inhibidas, se reproducen tan rápidamente como pueden y su ciclo vital puede ser tan solo de 10 a 30 h y termina por una serie de sucesos físicos diferenciados que se denominan mitosis y que tienen como finalidad lograr la división de la célula en dos células hijas nuevas.
Profase
La primera etapa de la mitosis, denominada profase. Mientras se forma el haz, los cromosomas del núcleo (que en la interfase corresponden a hebras laxamente enrolladas) se condensan en cromosomas bien definidos.
Prometafase
Durante la prometafase, las puntas de los microtúbulos en crecimiento del áster se fragmentan en la cubierta nuclear. Al mismo tiempo, los múltiples microtúbulos del áster se unen a las cromátidas en los centrómeros, donde las cromátidas pareadas aún están unidas entre sí; a continuación, los túbulos tiran de una cromátida de cada par, alejando cada una hacia el polo celular correspondiente.
Metafase
Durante la metafase, los dos ásteres del aparato mitótico se separan. Este empuje parece suceder porque las puntas de los microtúbulos de ambos, donde se imbrican entre sí para formar el huso mitótico, realmente se empujan mutuamente. Unas moléculas proteicas contráctiles diminutas, o «motores moleculares», que tal vez estén formadas por la proteína muscular actina se extienden entre las puntas respectivas para, utilizando una acción paulatina como en el músculo, deslicen activamente las puntas en dirección opuesta una de otra. Simultáneamente, los microtúbulos insertados en las cromátidas tiran fuertemente de ellas hasta el centro de la célula, alineándolas para formar el plano ecuatorial del huso mitótico.
Anafase
Durante esta fase, las dos cromátidas de cada cromosoma son separadas en el centrómero. Se separan los 46 pares de cromátidas y se forman dos juegos independientes de 46 cromosomas hijos. Cada uno de ellos es empujado hacia cada uno de los ásteres de la mitosis, a medida que los dos polos respectivos de la célula en división se van separando entre sí.
Telofase
En la telofase, los dos juegos de cromosomas hijos se separan completamente. A continuación, el aparato mitótico se disuelve y se desarrolla una nueva membrana nuclear que rodea cada grupo de cromosomas. Esta membrana se forma a partir de porciones del retículo endoplásmico que ya están presentes en el citoplasma. Poco después, la célula se divide en dos, en la zona media entre los dos núcleos. Este pinzamiento se produce como consecuencia de la formación de un anillo contráctil de microfilamentos compuestos por actina y, probablemente, miosina (las dos proteínas contráctiles del músculo) en la unión de las células nuevas que se están desarrollando, anillo que las termina separando.
Cuando las células ya no se necesitan, o cuando se convierten en una amenaza para el organismo, sufren una muerte celular programada suicida, o apoptosis. Este proceso implica una cascada proteolítica específica que hace que la célula se encoja y condense para desmontar su citoesqueleto y alterar su superficie de tal forma que una célula fagocítica cercana, como un macrófago, se pueda unir a la membrana celular y digerir la célula.
El cáncer se debe en la mayoría de los casos a la mutación o a alguna otra activación anormal de los genes celulares que controlan el crecimiento y la mitosis celular. Los protooncogenes son genes normales que codifican diversas proteínas responsables del control de la adhesión celular, el crecimiento y la visión. Si mutan o se activan de forma excesiva, los protooncogenes pueden convertirse en oncogenes con funcionamiento anómalo capaces de provocar cáncer. En los cánceres humanos se han descubierto hasta 100 tipos distintos de oncogenes.
Las células son los elementos básicos que conforman el organismo, aportan:
Estructura de los tejidos
Estructuras de los órganos del cuerpo
De igual manera:
Ingieren los nutrientes y los convierten en energía, y realizan funciones especializadas.
Contienen el código hereditario del organismo (controla las sustancias sintetizadas por las células y les permite realizar copias de sí mismas).
Las diferentes sustancias que componen la célula se conocen colectivamente como protoplasma. El protoplasma está compuesto principalmente por cinco sustancias:
Agua (principal medio líquido de la célula es el agua, que está presente en la mayoría de las células, excepto en los adipocitos, en una concentración del 70-85%)
Electrólitos que son productos químicos inorgánicos de las reacciones celulares y además son necesarios para el funcionamiento de algunos de los mecanismos de control celulares (potasio, el magnesio, el fosfato, el sulfato, el bicarbonato y cantidades más pequeñas de sodio, cloruro y calcio)
Proteínas
Lípidos
Hidratos de carbono.
Estructuras membranosas de la célula
La mayoría de los orgánulos de la célula están cubiertos por membranas compuestas principalmente por lípidos y proteínas. Los lípidos de las membranas proporcionan una barrera que impide el movimiento de agua y sustancias hidrosolubles desde un compartimiento celular a otro, porque el agua no es soluble en lípidos.
Membrana celular La membrana celular (también denominada membrana plasmática) cubre la célula y es una estructura elástica, fina y flexible que tiene un grosor de tan solo 7,5 a 10 nm. Está formada casi totalmente por proteínas y lípidos, con una composición aproximada de un 55% de proteínas, un 25% de fosfolípidos, un 13% de colesterol, un 4% de otros lípidos y un 3% de hidratos de carbono. La barrera lipídica de la membrana celular impide la penetración de sustancias hidrosolubles y suu estructura básica consiste en una bicapa lipídica, una película fina de doble capa de lípidos, cada una de las cuales contiene una sola molécula de grosor y rodea de forma continua toda la superficie celular. En esta película lipídica se encuentran intercaladas grandes proteínas globulares.
Las estructuras de hidratos de carbono unidas a la superficie exterior de la célula tienen varias funciones importantes: 1. Muchas de ellas tienen una carga eléctrica negativa que proporciona a la mayoría de las células una carga negativa a toda la superficie que repele a otros objetos cargados negativamente. 2. El glucocáliz de algunas células se une al glucocáliz de otras, con lo que une las células entre sí. 3. Muchos de los hidratos de carbono actúan como componentes del receptor para la unión de hormonas 4. Algunas estructuras de hidratos de carbono participan en reacciones inmunitarias.
Citoplasma y sus orgánulos
En el citoplasma se encuentran dispersos glóbulos de grasa neutra, gránulos de glucógeno, ribosomas, vesículas secretoras y cinco orgánulos especialmente importantes: el retículo endoplásmico, el aparato de Golgi, las mitocondrias, los lisosomas y los peroxisomas. Retículo endoplásmico.
Los túbulos y vesículas están conectados entre sí y sus paredes también están formadas por membranas de bicapa lipídica que contienen grandes cantidades de proteínas, similares a la membrana celular
Membrana nuclear
La membrana nuclear, también conocida como cubierta nuclear, consiste realmente en dos membranas bicapa separadas, una dentro de la otra. La membrana externa es una continuación del retículo endoplásmico del citoplasma celular y el espacio que queda entre las dos membranas nucleares también es una continuación con el espacio del interior del retículo endoplásmico, como se ve en la figura 2-9. Varios miles de poros nucleares atraviesan la membrana nuclear. El nucléolo aumenta de tamaño considerablemente cuando la célula está sintetizando proteínas activamente. La formación de los nucléolos (y de los ribosomas del citoplasma fuera del núcleo) comienza en el núcleo.
La mayoría de estas sustancias atraviesan la membrana celular por difusión y transporte activo.
DIFUSION
La difusión implica el movimiento simple a través de la membrana, provocado por el movimiento aleatorio de las moléculas de la sustancia; las sustancias se desplazan a través de los poros de la membrana celular o, en el caso de las sustancias liposolubles, a través de la matriz lipídica de la membrana.
TRANSPORTE ACTIVO
El transporte activo implica el transporte real de una sustancia a través de la membrana mediante una estructura física de carácter proteico que penetra en todo el espesor de la membrana.
Las partículas muy grandes entran en la célula mediante una función especializada de la membrana celular que se denomina endocitosis.
Las formas principales de endocitosis son la pinocitosis y la fagocitosis. La pinocitosis se refiere a la ingestión de partículas diminutas que forman vesículas de líquido extracelular y partículas dentro del citoplasma celular.
La fagocitosis se refiere a la ingestión de partículas grandes, como bacterias, células enteras o porciones de tejido degenerado.
Pinocitosis La pinocitosis se produce continuamente en las membranas celulares de la mayoría de las células, pero es especialmente rápida en algunas de ellas.
Las vesículas de pinocitosis son tan pequeñas, habitualmente de solo 100 a 200 nm de diámetro, que la mayoría de ellas solo se pueden ver con un microscopio electrónico. La pinocitosis es el único medio por el cual las principales macromoléculas grandes, como la mayoría de las moléculas proteicas, pueden entrar en las células. Este proceso requiere el aporte de energía desde el interior de la célula, que es suministrada por el ATP y de la presencia del ion calcio en el líquido extracelular, que probablemente reaccionará con los filamentos de proteína contráctil que hay por debajo de las hendiduras revestidas para proporcionar la fuerza que se necesita para que se produzca la separación de las vesículas lejos de la membrana celular.
FAGOCITOSIS
Solo algunas células tienen la capacidad de realizar la fagocitosis, principalmente los macrófagos tisulares y algunos leucocitos sanguíneos. La fagocitosis se inicia cuando una partícula, como una bacteria, una célula muerta o un resto de tejido, se une a los receptores de la superficie de los fagocitos. En el caso de las bacterias, cada una de ellas ya suele estar unida a un anticuerpo específico frente a ese organismo y es ese anticuerpo el que se une a los receptores de fagocitosis, arrastrando consigo a la bacteria. La fagocitosis se produce en las etapas siguientes:
1. Los receptores de la membrana celular se unen a los ligandos de superficie de la partícula.
2. La zona de la membrana alrededor de los puntos de unión se evagina hacia fuera en una fracción de segundo para rodear a toda la partícula, y después cada vez más receptores de membrana se unen a los ligandos de la partícula. Todo esto ocurre bruscamente, como si fuera una cremallera, para formar una vesícula fagocítica cerrada.
3. La actina y otras fibrillas contráctiles del citoplasma rodean la vesícula fagocítica y se contraen en torno a su borde exterior, empujando la vesícula hacia el interior. 4. Las proteínas contráctiles contraen el eje de la vesícula, de forma tan completa que esta se separa de la membrana celular, dejando la vesícula en el interior de la célula del mismo modo que se forman las vesículas de pinocitosis. Las vesículas de pinocitosis y fagocitosis que contienen los lisosomas pueden considerarse los órganos digestivos de las células. Regresión de los tejidos y autólisis de las células Reciclado de los orgánulos celulares: autofagia
Los lisosomas desempeñan un papel fundamental en el proceso de autofagia, que literalmente significa comerse a sí mismo. La autofagia es un proceso de limpieza según el cual los orgánulos y los grandes agregados proteicos obsoletos se degradan y se reciclan. Los orgánulos celulares deteriorados son transferidos a lisosomas por estructuras de doble membrana denominadas autofagosomas, que se forman en el citosol. La invaginación de la membrana lisosómica y la formación de vesículas ofrecen otra ruta para el transporte de las estructuras citosólicas a la luz de los lisosomas. La autofagia contribuye a la renovación rutinaria de los componentes citoplásmicos y es un mecanismo clave para el desarrollo tisular, para la supervivencia celular en situaciones de escasez de nutrientes y para el mantenimiento de la homeostasis.Locomoción de las células, es el movimiento más visible que se produce en el organismo es el de los miocitos en el músculo esquelético, cardíaco y liso, que constituye casi el 50% de toda la masa del organismo.
El movimiento amebiano es el movimiento de toda la célula en relación con su entorno, como el movimiento de los leucocitos a través de los tejidos, su nombre por el movimiento de las amebas, comienza con la protrusión de un seudópodo desde un extremo de la célula, el cual se proyecta lejos de la célula y se asegura parcialmente en una zona nueva. Después, tira del resto de la célula hacia él. Cuando las vesículas entran a formar parte de la membrana del seudópodo se abren de forma que su interior se revierte hacia el exterior y los receptores protruyen ahora hacia el exterior y se unen a los ligandos de los tejidos circundantes. En el extremo opuesto de la célula los receptores se alejan de sus ligandos y forman nuevas vesículas de endocitosis. Después, estas vesículas corren hacia el extremo del seudópodo de la célula, donde se usan para formar una membrana nueva para este. En el citoplasma de todas las células hay una cantidad moderada o grande de la proteína actina, gran parte de la cual se encuentra en forma de moléculas sencillas que no proporcionan ninguna otra potencia motriz; sin embargo, estas moléculas se polimerizan para formar una red filamentosa que se contrae con una proteína de unión a la actina, como la miosina. Todo el proceso recibe su energía del compuesto ATP de alta energía. Este mecanismo sucede en el seudópodo de una célula en movimiento, en el que una red de filamentos de actina de este tipo forma un nuevo soporte interno para el seudópodo que aumenta de tamaño.
Control del movimiento amebiano: quimiotaxia El iniciador más importante del movimiento amebiano es la quimiotaxia, proceso que se produce como consecuencia de la aparición de determinadas sustancias en el tejido
Un segundo tipo de movimiento celular, el movimiento ciliar, es un movimiento a modo de látigo de los cilios que se encuentran en la superficie de las células. Este movimiento existe principalmente solo en dos lugares del cuerpo humano: en la superficie de las vías aéreas y en la superficie interna de las trompas uterinas (trompas de Falopio) del aparato reproductor.
1. Organización funcional del cuerpo humano y control del medio interno
La fisiología se encargará de estudiar el funcionamiento de nuestro cuerpo y sus diversos aparatos y sistemas, dicha ciencia se divide en otras ramas más específicas como es el caso de fisiología vírica, fisiología bacteriana, fisiología celular, fisiología vegetal, fisiología de los invertebrados, fisiología de los vertebrados, fisiología de los mamíferos, fisiología humana y muchas otras subdivisiones.
Fisiología bacteriana
1.2. Fisiología humana
Pretende explicar los mecanismos y características del cuerpo humano para ser considerado un ser vivo y las necesidades que tiene nuestro cuerpo
2. LAS CELULAS COMO UNIDADES VIVAS DEL CUERPO
La unidad viva básica del cuerpo es la célula. Cada célula está caracterizada para cumplir especialmente para realizar una o más funciones concretas. Los eritrocitos, son un ejemplo cuya cantidad asciende aproximadamente a 25 billones en cada ser humano, transportan el oxígeno desde los pulmones a los tejidos. Las células tienen características básicas y similares entre sí. Por ejemplo, el oxígeno reacciona con los hidratos de carbono, grasas y proteínas para liberar la energía necesaria para mantener las funciones de todas las células. Las células tienen la capacidad de reproducirse formando más células de su propia descendencia, es decir puede regenerar una zona afectada.
CÉLULA
3. LIQUIDO EXTRACELULAR: MEDIO INTERNO
El cuerpo humano está constituido en un 60% de líquido, principalmente una solución acuosa de iones y otras sustancias. Se conoce como líquido intracelular, al que está dentro de la célula, aproximadamente una tercera parte se encuentra en los espacios exteriores a las células y se denomina líquido extracelular, el cual está en movimiento constante y se transporta rápidamente en la sangre circulante para mezclarse después entre la sangre y los líquidos tisulares por difusión a través de las paredes capilares. En este líquido están los iones y nutrientes que necesitan las células para mantenerse vivas, por lo que todas ellas viven esencialmente en el mismo entorno de líquido extracelular, denominado medio interno del organismo. Las células tienen la capacidad de realizar sus funciones especiales, siempre que el líquido extracelular disponga de las concentraciones adecuadas de oxígeno, glucosa, distintos iones, aminoácidos, sustancias grasas y otros componentes.
Claude Bernard (1813-1878) Introdujo el termino milieu inérieur, para referirse al líquido extracelular.
3.1. Diferencias entre liquido
El líquido extracelular tiene un alto contenido de iones sodio, cloruro y bicarbonato adicionado de nutrientes para las células, como oxígeno, glucosa, ácidos grasos y aminoácidos. Contiene dióxido de carbono, que es transportado desde las células a los pulmones para ser excretado junto con otros residuos celulares que se transportan a los riñones para su excreción. El líquido intracelular contiene grandes cantidades de iones potasio, magnesio y fosfato y en el líquido extracelular iones sodio y cloruro.
4. Homeostasis
En 1929, Walter Cannon (1871-1945) fisiólogo estadounidense acuñó el término homeostasis al referirse al mantenimiento de unas condiciones casi constantes del medio interno. Los distintos tipos iones, nutrientes, productos de desecho y otros componentes del organismo están regulados en un intervalo de valores, estos no poseen valores fijos. Por ejemplo, las variaciones en la concentración de iones hidrógeno en la sangre se sitúan por generalmente por debajo de 5 nanomoles por litro (0,000000005 moles por litro. Existen poderosos sistemas de control para mantener las concentraciones de sodio e hidrógeno, así como la mayoría de los demás iones, nutrientes y sustancias del organismo, en niveles que permitan que las células, los tejidos y los órganos lleven a cabo sus funciones normales, pese a grandes variaciones ambientales y a las dificultades derivadas de lesiones y enfermedades. Las funciones del organismo exigen acciones integradas de células, tejidos, órganos y los múltiples sistemas de control nervioso, hormonales y locales que contribuyen conjuntamente a la homeostasis y a la buena salud. Se considera enfermedad un estado de ruptura de la homeostasis. Períodos de tiempo prolongados de presión arterial alta puede provocar perjuicios en diversos órganos, entre ellos, los riñones, nos lleva a cadena en aumentos de la presión arterial y, con ello, más daños renales. La fisiopatología pretende explicar cómo se alteran los diversos procesos fisiológicos en la estancia de enfermedades y lesiones.
. Por ejemplo, hay enfermedades que impiden la capacidad de los riñones de excretar sales y agua, esto puede conducir a una elevación de la presión arterial.
Primero definiremos que el líquido extracelular se dividirá en dos etapas, la primera de ellas consiste en el movimiento de la sangre por el cuerpo dentro de los vasos sanguíneos, y la segunda es el movimiento del líquido entre los capilares sanguíneos y los espacios intercelulares entre las células tisulares, con forme avanza esta etapa el líquido extracelular se encuentra entre porción del plasma de la sangre y liquido intersticial que es el que rellena los espacios intercelulares. Las paredes de los capilares son permeables a la mayoría de las moléculas del plasma sanguíneo, excepto en proteínas plasmáticas, porque son demasiado grandes para pasar con facilidad atravesar dichos capilares.
Este proceso se lleva acabo por el movimiento cinético de las moléculas en el plasma y en el líquido intersticial
Pocas células se encuentran a más de 50 μm de un capilar, lo que garantiza la difusión de casi cualquier sustancia desde el capilar hacia la célula en pocos segundos, es decir, que el líquido extracelular de cualquier zona del organismo, tanto en plasma como en líquido intersticial, se está mezclando continuamente, manteniendo la homogeneidad del líquido extracelular en todo el organismo.
4.2. Origen de los nutrientes en el líquido extracelular
4.2.1. Aparato respiratorio
La membrana que separa los alvéolos y la luz de los capilares pulmonares, es decir, la membrana alveolar, tiene un grosor de tan solo 0,4 a 2 μm y el oxígeno se difunde rápidamente por el movimiento molecular a través de esta membrana para entrar en la sangre. Difiriendo así del movimiento cinético antes mencionado en el proceso de difusión de las moléculas en el plasma y liquido intersticial.
Los pulmones captan el oxígeno a través de los alvéolos, adquiriendo el oxígeno que necesitan las células para sus funciones.
Una gran porción de la sangre que bombea el corazón atraviesa las paredes del aparato digestivo, donde se absorben los distintos nutrientes, incluidos los hidratos de carbono, los ácidos grasos y los aminoácidos, desde el alimento ingerido hacia el líquido extracelular de la sangre.
El hígado es el encargado de eliminar sustancias toxicas o cambiar la composición química, convirtiendo los nutrientes en formas mas utilizables
Los músculos nos ayudan a desplazar los alimentos que se necesitan para la nutrición, también permite la movilidad como protección frente al entorno.
Al mismo tiempo que la sangre capta el oxígeno en los pulmones, se libera el dióxido de carbono desde la sangre hacia los alvéolos y el movimiento respiratorio de aire que entra y sale de los pulmones transporta el dióxido de carbono hacia la atmósfera. El dióxido de carbono es el más abundante de todos los productos del metabolismo.
Al pasar la sangre a través de los riñones se eliminan del plasma la mayoría de las sustancias:
dióxido de carbono
urea
ácido úrico
iones
agua de los alimentos
Los riñones realizan su función filtrando primero una gran cantidad de plasma a través de los capilares de los glomérulos hacia los túbulos y reabsorbiendo hacia la sangre:
Glucosa
Aminoácidos
cantidades apropiadas de agua
La mayoría de las demás sustancias que el organismo no necesita, en especial los productos de desecho metabólicos, como la urea, se reabsorben mal y atraviesan los túbulos renales hacia la orina.
Los productos residuales restantes que no son eliminados en la orina, se eliminan a través de las heces, gracias a la ayuda del aparato digestivo.
Tiene funciones de detoxificación o eliminación de numerosos fármacos y productos químicos que se ingieren. Secreta muchos de estos residuos en la bilis para su eliminación ulterior en las heces.
Sistema Nervioso
Conformado por tres partes principales:
La porción de aferencia sensitiva (órganos de los sentidos, receptores en la piel…)
El sistema nervioso central o la porción integradora (cerebro [almacena información, genera los pensamientos, crea la ambición y determina las reacciones que debe manifestar el cuerpo en respuesta a las sensaciones] y médula espinal)
La porción eferente motora
Un segmento importante del sistema nervioso es el sistema nervioso autónomo o neurovegetativo, que funciona a escala subconsciente y controla muchas de las funciones de los órganos internos.
Hormona tiroidea aumenta la velocidad de la mayoría de las reacciones química de todas las células.
El organismo tiene ocho glándulas endocrinas mayores y varios órganos y tejidos que segregan hormonas. Las hormonas se transportan en el líquido extracelular a otras partes del cuerpo para regular las funciones celulares.
Insulina controla el metabolismo de la glucosa.
Hormonas corticosuprarrenales controlan los iones sodio y potasio y el metabolismo proteico.
Hormona paratiroidea controla el calcio y el fosfato en el hueso.
El sistema nervioso regula numerosas actividades musculares y secretoras del organismo, mientras que el sistema hormonal regula muchas de las funciones metabólicas. Normalmente, los sistemas nerviosos y hormonales trabajan de forma coordinada para controlar esencialmente todos los sistemas orgánicos del cuerpo.
La piel proporciona una barrera física para el cuerpo, ayuda a regular la temperatura corporal
El sistema inmunitario está integrado por los glóbulos blancos, células tisulares derivadas de los glóbulos blancos, el timo, nódulos linfáticos y vasos linfáticos que protegen el cuerpo de patógenos como bacterias, virus, parásitos y hongos. Proporcionando un mecanismo para que el cuerpo:
1) diferencie sus propias células de las células y sustancias extrañas
2) destruya al invasor por fagocitosis o mediante la producción de linfocitos sensibilizados o proteínas especializadas
Hay muchos otros sistemas de control que actúan dentro de los órganos para controlar las funciones de sus componentes, otros actúan a través de todo el organismo para controlar las interrelaciones entre los órganos.
El organismo tiene un mecanismo de control especial para mantener una concentración casi exacta y constante de oxígeno en el líquido extracelular que depende principalmente de las características químicas de la hemoglobina, se conoce como función amortiguadora de oxígeno de la hemoglobina.
Primero la hemoglobina se combina con el oxígeno a medida que la sangre atraviesa los pulmones, después cuando la sangre atraviesa los capilares tisulares, su propia afinidad química por el oxígeno permite que no lo libere en los tejidos si ya hay demasiado. No obstante, si la concentración de oxígeno
La concentración de dióxido de carbono en el líquido extracelular está regulada de una forma muy diferente ya que es el principal producto final de las reacciones oxidativas de las células. La concentración por arriba de lo normal de dióxido de carbono en la sangre excita el centro respiratorio, haciendo que el individuo tenga una respiración rápida y profunda. Esta aumenta la espiración de dióxido de carbono y, por tanto, elimina el exceso de dióxido de carbono de la sangre y los líquidos tisulares. El descenso de la presión arterial por debajo de lo normal relaja los receptores de estiramiento y hace que el centro vasomotor se vuelva más activo de lo habitual, con lo que se provoca vasoconstricción y un aumento de la acción de la bomba cardíaca.
Diversos sistemas de control del organismo actúan mediante una retroalimentación negativa, por ejemplo, la regulación de la concentración del dióxido de carbono, la ventilación pulmonar aumenta cuando dicha concentración se eleva en el líquido extracelular, provocando que el aumento de la ventilación pulmonar disminuya la concentración de dióxido de carbono en el líquido extracelular porque los pulmones espiran cantidades mayores de dióxido de carbono del organismo. Por el contrario, una concentración de dióxido de carbono que disminuye demasiado produce una retroalimentación que tiende a aumentar la concentración. En general, si algún factor se vuelve excesivo o deficiente, un sistema de control inicia una retroalimentación negativa que consiste en una serie de cambios que devuelven ese factor hacia un determinado valor medio, con lo que se mantiene la homeostasis.
El grado de eficacia con el que un sistema de control mantiene las condiciones constantes está determinado por la ganancia de la retroalimentación negativa. El sistema de control por retroalimentación provoca una corrección. La ganancia del sistema se calcula utilizando la fórmula siguiente:
Es decir, en el sistema de barorreceptores la corrección es de –50 mmHg y el error que persiste es de +25 mmHg. Por tanto, la ganancia del sistema de barorreceptores de esa persona en cuanto al control de la presión arterial es de –50 dividido por +25, o –2, es decir, un trastorno que aumente o disminuya la presión arterial tiene un efecto de tan solo un tercio de lo que ocurriría si no actuara el sistema de control. Las ganancias de algunos otros sistemas de control fisiológicos son mucho mayores que las del sistema de barorreceptores.
El corazón humano sano bombea aproximadamente 5 litros de sangre por minuto
Si una persona tiene bruscamente una hemorragia de 2 l, la cantidad de sangre del organismo disminuye hasta un nivel tan bajo que no queda sangre suficiente para que el corazón bombee eficazmente, por consecuencia, cae la presión arterial y disminuye el flujo de sangre que llega hacia el músculo cardíaco a través de los vasos coronarios, por lo tanto el corazón se debilita, el efecto de bomba pierde eficacia, disminuye aún más el flujo de sangre coronario y el corazón se debilite aún más; este ciclo se repite una y otra vez, hasta que se produce la muerte.
Cuando se rompe un vaso sanguíneo comienza formarse un coagulo, dentro de este se activan muchas enzimas denominadas factores de coagulación.
Este proceso continúa hasta que el orificio del vaso se tapona y cesa la hemorragia, aunque a veces, este mecanismo se descontrola y provoca la formación de coágulos no deseados. Este proceso es el que inicia la mayoría de los ataques cardíacos, que pueden deberse a la formación inicial de un coágulo en la superficie interna de una placa ateroesclerótica en la arteria coronaria cuyo crecimiento continúa hasta que se bloquea la arteria. El parto es otro ejemplo en el que la retroalimentación positiva tiene gran importancia, el estiramiento del cuello uterino, envía señales a través del músculo uterino que vuelven hasta el cuerpo del útero, provocando contracciones aún más potentes
Existen mecanismos de control interconectados, muchos de estos son sistemas de retroalimentación simples similares, pero tienen un grado de rapidez y complejidad mayor. Algunos movimientos del organismo son tan rápidos que no hay tiempo suficiente para que las señales nerviosas se desplacen desde la periferia del organismo hasta el cerebro y vuelvan a la periferia para controlar el movimiento, por lo que el cerebro aplica un principio que se conoce como control anterógrado, que hace que se contraigan los músculos apropiados, es decir, las señales del nervio sensible de las partes en movimiento informan al cerebro si el movimiento se está realizando correctamente.
En caso contrario, el cerebro corrige las señales anterógradas que envía hacia los músculos la siguiente vez que se necesite ese movimiento.
Después, si necesita nuevas correcciones, este proceso se realizará de nuevo en los movimientos sucesivos; es lo que se denomina control adaptativo, que, hasta cierto punto es una retroalimentación negativa retardada.
Resumen: Automatismo del organismo.
El objetivo es destacar la organización global del organismo y también la inter relación que existe entre los diversos sistemas y las contribuciones que aportan al organismo para mantener la homeostasis. Mientras se mantengan las condiciones normales en el medio interno, las células del organismo continuarán viviendo y funcionando correctamente. Existe un automatismo continuo del organismo por parte de las células al contribuir a la homeostasis y beneficiarse de ella. La disfunción extrema provoca la muerte y la disfunción moderada provoca la enfermedad.
Cada célula contribuye con su parte para el mantenimiento de las condiciones homeostáticas
Esta es la primera entrada de mi nuevo blog. Acabo de empezar a escribir este nuevo blog. ¡Mantente al día para leer más entradas! Suscríbete a continuación para recibir notificaciones cuando publique nuevo contenido.
Esto es una entrada de muestra, originalmente publicada como parte de Blogging University. Regístrate en uno de nuestros diez programas y empieza tu blog con buen pie.
Hoy vas a publicar una entrada. No te preocupes por el aspecto de tu blog. Tampoco te preocupes si todavía no le has puesto un nombre o si todo esto te agobia un poco. Tan solo haz clic en el botón «Nueva entrada» y explícanos por qué estás aquí.
¿Por qué es necesario?
Porque proporciona contexto a los nuevos lectores. ¿A qué te dedicas? ¿Por qué deberían leer tu blog?
Porque te ayudará a concentrarte en tus propias ideas sobre tu blog y en lo que quieres hacer con él.
La entrada puede ser corta o larga, una introducción de tu vida o una declaración de los objetivos del blog, un manifiesto de cara al futuro o una breve descripción del tipo de cosas que pretendes publicar.
Te ofrecemos algunos consejos útiles para ayudarte a empezar:
¿Por qué publicas tus entradas en lugar de escribir en un diario personal?
¿Sobre qué temas crees que escribirás?
¿Con quién te gustaría conectar a través de tu blog?
Si tu blog resulta ser un éxito a lo largo del próximo año, ¿qué objetivo te gustaría lograr?
No tienes por qué atarte a las decisiones que tomes ahora. Lo bueno de los blogs es que evolucionan constantemente a medida que aprendemos nuevas cosas, crecemos e interactuamos los unos con los otros. Pero está bien saber dónde y por qué empezaste, y plasmar tus objetivos puede darte más ideas para las entradas que quieres publicar.
¿No sabes por dónde empezar? Tan solo escribe lo primero que se te ocurra. Anne Lamott, autora de un libro sobre cómo escribir que nos encanta, afirma que debemos permitirnos escribir un «primer borrador de mierda». Anne está en lo cierto: tan solo tienes que empezar a escribir, y ya te encargarás de editarlo más tarde.
Cuando todo esté listo para publicarse, asigna entre tres y cinco etiquetas a la entrada que describan el centro de atención de tu blog: escritura, fotografía, ficción, educación, comida, coches, películas, deportes… ¡Lo que sea! Estas etiquetas ayudarán a los usuarios interesados en tus temas a encontrarte en el Lector. Una de las etiquetas debe ser «zerotohero», para que los nuevos blogueros también puedan encontrarte.